Gråmåke
Engelsk navn:
Herring Gull
Vitenskapelig navn:
Larus argentatus
ForfatterE:
Sist oppdatert:
Beskrivelse
Gråmåken er en stor måke med lengde på 55 – 67 cm fra stjert til nebb og en vekt mellom 700 – 1 500 gram. Hannen er større enn hunnen, selv om det ikke er lett å skille mellom dem i felt.
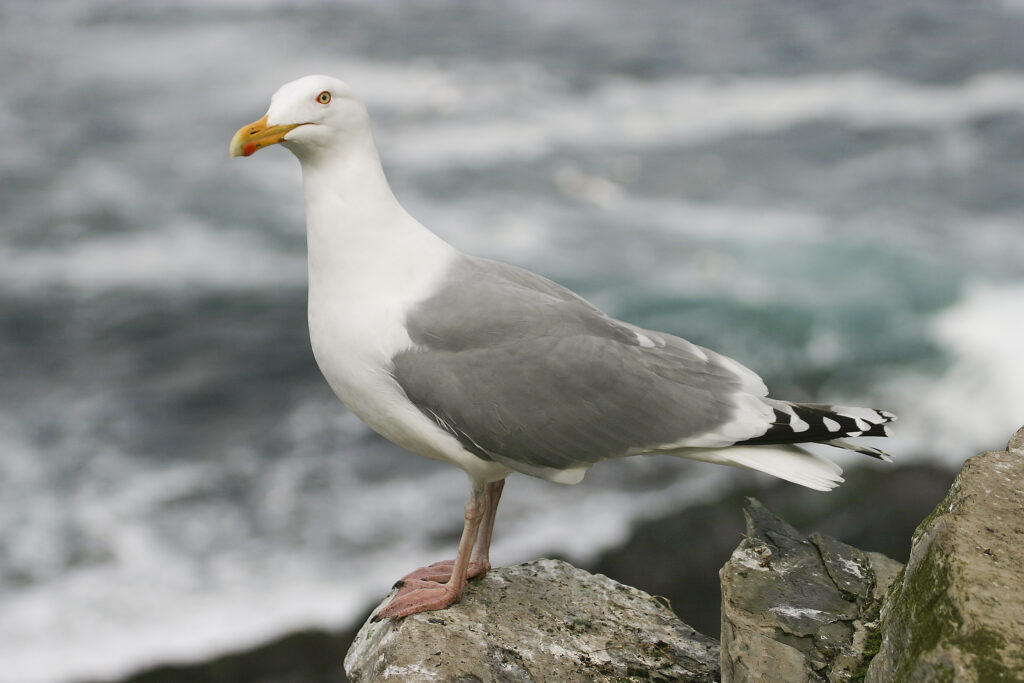
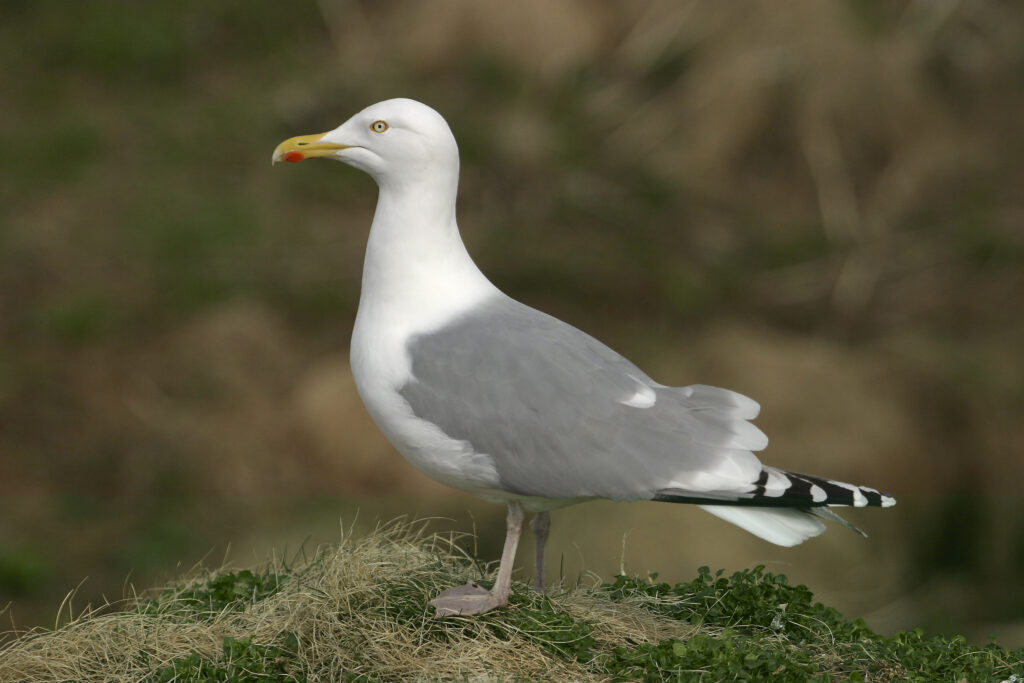
Gråmåken har lysegrå rygg og vingeoverside, mens vingespissene er svarte med hvite flekker. Beina er rosa, og nebbet er kraftig gult med et rødt merke nesten lengst ut på undernebbet.
Ungfuglene har en grå- eller brunspraglete fjærdrakt før de får voksendrakt etter omtrent fem år. Som ungfugl har gråmåkene mørkt nebb og mørke øyne, mens voksne fugler har gule øyne. Gråmåken har, i likhet med flere av måkeartene, en komplisert taksonomi. Det er fire underarter av gråmåke hvorav den norske populasjonen tilhører nominatarten Larus argentatus argentatus.
Relevante lenker:
Rødlistestatus for gråmåke
Arten regnes som endemisk for Europa (Birdlife International 2021b).
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Den norske hekkebestanden av gråmåke ble i 2014 anslått til 72 000 par og minkende (Anker-Nilssen et al. 2015, Shimmings & Øien 2015). Størstedelen av bestanden, 42 000 par i 2014, finnes i hekkeområder knyttet til Norskehavet, mens Nordsjøen-Skagerrak og Barentshavet ble estimert å huse henholdsvis 19 000 og 11 500 par (Anker-Nilssen et al. 2015, Shimmings & Øien 2015).
Den nye kartleggingen av norske sjøfugler anslår at det i 2023-2025 hekket under 6500 par gråmåker fra svenskegrensen og opp til sør for Lofoten. Det tallet er imidlertid et minimumstall og faktisk hekkebestand er sannsynligvis en del høyere (Molværsmyr upubliserte data).
Resultat fra dronekartlegging estimerer at det hekket 2 572-2 778 par i Hordaland i 2023-2024 (Breistøl upubliserte data), mens tradisjonelle tellinger fra båt estimerte antallet hekkende gråmåker til 2600 par i 2014. Disse tallene reflekterer sannsynligvis en stor nedgang i gråmåkebestanden siste tiåret, da telling fra båt underestimerer antallet hekkepar sammenlignet med dronetelling (SEAPOP upubliserte data).
Den europeiske bestanden av gråmåke teller 531 000 – 608 000 par og er minkende (Birdlife International 2021a, b).
Nasjonalt
| Region/område | Estimert antall (par) | År | Referanse |
|---|---|---|---|
| Svalbard | <5 | 2014 | Anker-Nilssen et al. 2015 |
| Jan Mayen | <5 | 2014 | Anker-Nilssen et al. 2015 |
| Fastlandet | 46 989 | 2024 | SEAPOP 2024 |
| Barentshavet | 13 746 | 2024 | SEAPOP 2024 |
| Norskehavet | 15 064 | 2024 | SEAPOP 2024 |
| Nordsjøen | 18 156 | 2024 | SEAPOP 2024 |
| Norge totalt | <46 999 |
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 1 100 000 | Individer | Synkende | Environment and Climate Change Canada and Birds Canada 2024 | |
| Danmark | 85 926 | Par | Stabil (kortsiktig, 2010-2017), Økende (langsiktig. 1988-2017) | 2013 – 2018 | European Commission 2020 |
| England | 104 991 | AON | 2015 – 2023 | Burnell et al. 2023 | |
| Finland | 18 386–24 393 | Par | Synkende (1980-2018) | 2013 – 2018 | European Commission 2020 |
| Færøyene | 1 500 | Par | 1981 | Frederiksen 2010 | |
| Grønland | 50 | Par | 2008 | Frederiksen 2010 | |
| Island | 5 000–10 000 | Par | 1995 | Frederiksen 2010 | |
| Nord-Irland (UK) | 8 477 | AON | 2015 – 2023 | Burnell et al. 2023 | |
| Republikken Irland | 18 645 | AON | 2015 – 2023 | Burnell et al. 2023 | |
| Russland | 8 000 | Par | Olsen & Larsson 2003 | ||
| Skottland | 100 161 | AON | 2015 – 2023 | Burnell et al. 2023 | |
| Sverige | 44 000–79 000 | Par | Stabil (kortsiktig, 2002-2018), Synkende (langsiktig, 1987-2018) | 2013 – 2018 | European Commission 2020 |
| Wales | 23 581 | AON | 2015 – 2023 | Burnell et al. 2023 | |
| Globalt | 1 060 000–1 220 000 | Individer (voksne) | Synkende | 2018 | BirdLife International 2021 |
AON=Apparently Occupied Nests
Hekkeutbredelse
Gråmåke har en stor utbredelse og hekker i et belte over Vest-Europa fra Island og ned til nordvestre delen av den Iberiske halvøya og strekker seg i øst helt til østre deler av Russland.
Den hekker også fåtallig på Grønland (Boertmann & Frederiksen 2016) og på innlandslokasjoner i nordøstre kontinental-Europa. I Nord-Amerika og Asia går beltet over til utbredelsen av den nært beslektede amerikagråmåken Larus smithsonianus.
Den hekker først og fremst langs kysten, men kan også hekke i ferskvann, spesielt i Finland og Sverige (Birdlife International 2021b).
Den har også i økende grad begynt å hekke i byer og industriområder (Rock 2005). Generelt er gråmåken mer kystnær enn andre måker.
Kart: Gråmåkens hekkeutbredelse i Norge.
Les mer…
Her oppgis våre siste estimater av hekkebestander for denne arten. Vi bruker statistiske utbredelsesmodeller i kombinasjon med tellinger til å beregne hvor fuglene hekker og hvor store hekkebestandene er.
Trekk- og vinterområder
Trekkstrategiene til gråmåken omfatter hele spennet av vintertilpasninger, fra nesten fullstendig trekkende i nord, via partielt trekkende, til stasjonær i sør (del Hoyo et al. 1992).
Partielt trekk er en mellomting mellom fullstendig trekk og stasjonære overvintringsstrategier, der en del av bestanden trekker om vinteren mens den resterende delen forblir stasjonær (Chapman et al. 2011).
Nordlige gråmåker trekker hovedsakelig, selv om noen kan bli igjen langs kysten. Sørnorske bestander, i likhet med britiske og skotske, er partielt trekkende (Bakken et al. 2003, O’Hanlon et al. 2022).
Overvintringsområdet strekker seg helt fra norske farvann til Nordsjølandene og den Engelske kanal, med noen få gjenfunn helt ned til Biscayabukten og Nord-Portugal (Bakken et al. 2003).
Om vinteren brukte britiske gråmåker hovedsakelig tidevannssonen, men også terrestriske og urbane habitater (O’Hanlon et al. 2022).
Arealbruk i ulike årstider basert på sporingsinformasjon fra individer i utvalgte lokaliteter. Velg hvilke årstider du vil se arealbruken for i øvre venstre hjørne.
Les mer…
Kartet viser kjernetetthetsfordelinger (kernel distributions) lagt over alle tilgjengelige datapunkter for valgt årstid. Disse er basert på individuelle sporingsdata fra hekkende fugler på lokaliteter angitt med sirkler (svart sirkel = informasjon tilgjengelig for høst, vinter og vår; hvit sirkel = informasjon tilgjengelig for sommer).
Økende fargeintensitet på polygonene representerer hhv 25 %, 50 % og 75 % sannsynlighetskonturer for disse funksjonene. Med andre ord viser kartene sannsynligheten for at fugler av denne arten befinner seg i området, basert på de tilgjengelige dataene.
For å zoome: Scroll med musa. For å panorere kartet: Hold inne venstre musknapp og dra. For å endre klodens vinkling: Hold inne høyre musknapp og dra.
Kilde for høst-, vinter- og vår-data er SEATRACK. Kilde for sommerdata er SEAPOP.
Bestandsutvikling
Den norske hekkebestanden av gråmåke økte noe fra 1985 til tidlig 2000-tallet, hvoretter bestandene har gått sterkt tilbake (Fauchald et al. 2015). Fra 2006 og til 2015 minket bestanden kraftig og estimatet av den norske hekkebestanden gikk ned fra 233 000 til 72 000 par (Anker-Nilssen et al. 2015, Barrett et al. 2006).
Nye analyser viser at gråmåkebestanden i Norge har gått ned med 17 % mellom 2014 og 2024. Totalt sett har hekkebestanden i Norge gått ned 43 % mellom 1980 og 2024 (Arnberg, upublisert).
Lokale tellinger i sør viser fortsatt stor tilbakegang: i sjøfuglreservatene i Vest-Agder har de gått ned med 50 % de siste 30 årene (Olsen 2025) og en studie viser at nedgangen trolig er enda større utenfor verneområder (Nilsson et al. 2025). Sørlandske bestander har sannsynligvis hatt en noe lavere nedgang enn de som er overvåket på Vestlandet, der noen av dem minket mellom 20-25 % det siste tiåret (Breistøl, upubliserte data).
Bestandene i Barentshavet har hatt en spesielt stor nedgang og gikk tilbake med 72 % mellom 1988 og 2013 (Fauchald et al. 2015). Noen steder i nord har bestandsnedgangen vært enda høyere, som for eksempel på Hornøya der bestanden har minket med 83 % 18 år (Reiertsen upubliserte data). Selv om Norge og Storbritannia har de største gråmåkebestandene i verden, er trendene i begge landene usikre, og spesielt innlandskoloniene er lite kjent (Birdlife International 2021b, Mitchell et al. 2004).
De irske koloniene minket med nærmere 90 % på 90-tallet, sannsynligvis på grunn av utbrudd av botulisme (Mitchell et al. 2004). Siden 2004 er bestanden antatt å være stabil (Coulson 2015).
Antallet urbane gråmåker i Storbritannia har økt med 14 % årlig (Mitchell et al. 2004), sannsynligvis som følge av en forflytning fra skjærgårdskoloniene heller enn en reell økning av bestanden (Reiertsen et al. 2025).
På litt mer enn ti år krympet den svenske bestanden med omtrent 25 % (Ottosson et al. 2025). Ved den siste svenske rødlistevurderingen var bestandsnedgangen estimert til 60 % (Artsdatabanken 2020). I Finland har gråmåken minket med mellom 30 og 50 % (Hyvärinen et al. 2019).
I Kvitsjøen økte antallet hekkende gråmåker kraftig fra 1960-tallet og frem til 1980-tallet, sannsynligvis på grunn av lavere jakttrykk, hvorpå bestanden minket til omtrent samme nivå som da tidsserien startet (Semashko et al. 2023). Nedgangen kan ha sammenheng med den økologiske tilstanden i Kvitsjøen som ledet til matmangel (Semashko et al. 2023).
Hos gråmåker i Nederland har man vist at det er en flyt av individer mellom ulike bestander. Dette kan påvirke estimater av populasjonsdynamikk når man kun ser på enkeltlokasjoner (Kentie et al. 2023).
Estimerte årlige hekkebestander på nøkkellokalitetene. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Estimerte årlige hekkebestander. Superskript ts betyr at estimatet er et totalestimat for hele populasjonen innenfor valgte nøkkellokalitet, og i betyr estimat for størrelsen av en hekkekoloni/lokalitet som er del av en større bestand i valgte nøkkellokalitet. For noen arter og kolonier er tallene basert på en totaltelling, mens andre estimat er basert på telling av prøvefelt (deler av en bestand), hvorav total hekkbestand er beregnet vha. utvikling i prøvefelt og tidligere tall på total hekkebestand.
Demografi
Overlevelse
Gråmåken har relativt høy voksenoverlevelse (i snitt for fire norske kolonier: 77 – 81 % per år; Oslofjorden, Mandal, Rauna, Lyngøy og Hornøya) og høyeste registrerte alder i Norge er 34 år (Lindesnes kommune) (Schonhowd 2026, SEAPOP upubliserte data).
Årlige overlevelsesrater med tilhørende konfidensintervall. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Overlevelsesrate og konfidensintervall er oppgitt for hvert år. Overlevelserate er basert på «fangst-gjenfangst»-data som blir innhentet på utvalgte nøkkellokaliteter hvert år: Et utvalg individuelle fugler blir merket med hver sin ring med unik kode, og basert på observasjoner av disse individene fra år til år kan en beregne gjennomsnittlig årlig overlevelse over samme tidsperiode.
Reproduksjon
Alder ved kjønnsmodning er 4 år og gråmåken legger 2-3 egg i en reirskål laget av gress. Begge kjønnene ruger eggene (28 dager) og mater ungene (minst 40 dager) (del Hoyo et al. 1992, Helberg et al. 2023).
Den hekker oftest i kolonier, iblant sammen med sildemåke og svartbak, men kan også hekke solitært. I en studie som sammenlignet rene gråmåkekolonier og blandingskolonier med svartbak hadde sistnevnte lavere hekkesuksess (Ellis & Good 2006).
Hekkesuksessen varierer mye fra år til år og mellom kolonier, til og med lokalt (Nilsson et al. 2025), men det siste tiåret ser den ut til å være noe større i sør enn i nord.
Beregnet årlig reproduksjon på nøkkellokalitetene. Enhet avhenger av art og lokalitet. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Hekkesuksess er definert på flere ulike måter avhengig av utvalgte arters livshistorie og overvåkingsmetodikk for de ulike nøkkellokalitetene. Alkefuglene (bortsett fra teist), i tillegg til havhest og havsule, legger kun ett egg pr par, mens de resterende har en kullstørrelse fra to og oppover. For de kolonihekkende artene, f.eks. lunde og havsule, er hekkesuksess målt på et utvalg av populasjonen, og de årlige estimatene har derfor et konfidensintervall som beskriver usikkerheten på estimatet. For noen arter/områder er hekkesuksess målt på samtlige individ i populasjonen, og det er derfor ikke noe usikkerhet knyttet til de årlige verdiene av hekkesuksess.
Næringsvalg
Gråmåken er en opportunistisk generalist med en variert diett som strekker seg fra marine til terrestriske byttedyr, blant annet fisk, krabbe, sjøstjerne, flerbørstemark, gnagere, insekter, bær og frukt, og meitemark (Pennycott et al. 2020a, Pennycott et al. 2020b).
I tidevannssonen spiser den bl.a. vanlig hjerteskjell og strandkrabbe (Enners et al. 2018). Fødesøk i tidevannssonen er i noen studier assosiert med større hekkesuksess (O’Hanlon et al. 2017), men ikke i andre (van Donk et al. 2017).
Fiskeavfall fra fiskerinæringer er, og har historisk vært, en viktig fødekilde mange steder (Coulson 2015, Hudson & Furness 1989, Sotillo et al. 2014), selv om det nå er ulovlig å kvitte seg med fiskeavfall på sjøen i Norge (FOR-2004-12-22-1878).
Fra en studie på gråmåkenes bruk av belgisk fiskeavfall blir hvitting og tunge ofte fortært, men også rødspette og sandflyndre (Sotillo et al. 2014).
Gråmåken kan også tilegne seg mat fra avfallsplasser og annen menneskelig føde (Götmark 1982, Rock 2005, Steenweg et al. 2011), men bruken av avfallsplasser kan være overdrevent i litteraturen (Coulson 2015).
Urbane måkebestander inneholder både individer som spesialisert seg på marin så vel som terrestrisk føde, men fra lavere trofisk nivå enn måker i rurale bestander (Keilen et al. 2022). I en studie var imidlertid bruk av fiskeavfall og avfallsplasser assosiert med større hekkesuksess, men den eksakte fordelingen mellom dem var ikke kjent (van Donk et al. 2017).
Før covid-19 var danske og overvintrende norske gråmåker også å finne fødesøkende på minkfarmer (Melendez-Arteaga et al. 2022). Gråmåke er også opportunistisk og kan spise en del fremmedarter, som for eksempel Rangea cuneata, en subtropisk musling (Pezy et al. 2022), pukkellaks (Dunlop et al. 2021), og amerikaknivskjell (Enners et al. 2018). Gråmåke kan også røve egg og unger fra andres reir, inklusive andre gråmåkers (Bårdsen & Bustnes 2022).
Rekkevidden for fødesøk under hekkingen er omtrent 40-50 km, selv om avstander opp mot 100 km har blitt rapportert (Birdlife International 2021b, Enners et al. 2018). Individer kan være stedtro i valg av områder for fødesøk, samtidig som det er stor variasjon mellom individ (Van Donk et al. 2020).
I tillegg varierer kostnaden for ulike fødesøksstrategier (Van Donk et al. 2019). En viss spesialisering av fødesøksstrategier, heller enn vekslende individuelle strategier, har vist seg å ha en positiv effekt på ungetilveksten, og dermed indirekte hekkesuksessen (van den Bosch et al. 2019).
Påvirkningsfaktorer og trusler
Studier viser at kolonier i områder med tilgjengelige tidevannssoner, andre viktige kystnære habitater eller nært jordbruksmark er større enn kolonier andre steder, og at arealvern av slike hekkeområder kan bidra til å bremse ytterliggere bestandsnedganger (O’Hanlon & Nager 2018).
I Norge er det vist at vern virker, og gråmåkekolonier med ferdselsrestriksjoner minker saktere og produserer flere unger enn ikke-vernede kolonier (Nilsson et al. 2025). Gråmåken ser også ut til å være en stedtro art som rekrutterer tilbake til der den kom fra, noe som gjør at selv om vern ikke alene kan snu utviklingen, vil vern av hekkende kolonier være et viktig tiltak for å bremse bestandsnedgangene (Nilsson et al. 2025).
Under hekkingen er gråmåke også sårbar ovenfor predasjon fra fremmedarter som mink og mårhund, samt menneskelige forstyrrelser (Nordström et al. 2003, Shimmings & Øien 2015, Väänänen et al. 2007). Fjerning av mink som et naturrestaureringstiltak har vært svært vellykket for andre arter (Ratcliffe et al. 2008).
Bestandsnedgangene av gråmåke er ofte koblet til endringer i fiskerinæringen (Birdlife International 2021b), blant annet var antallet hekkende gråmåker i Skottland sterkt korrelert med mengden fisk som ble rapportert levert i nærmeste havn (Foster et al. 2017).
I Norge kan arter som gråmåke også bli skadet og drept under fiske med snurpenot, der de fanges i nota når den trekkes. Store mengder døde måker ble funnet drevet i land i Troms mellom 2015 og 2020, sannsynligvis i forbindelse med kystnært sildefiske (Christensen-Dalsgaard et al. 2022).
Også endringer i det marine miljøet, som dannelse av rev av stillehavsøsters Crassostrea gigas kan ha en negativ påvirkning på mattilgangen for gråmåke (Markert et al. 2013). I tillegg er plast en utfordring og i en skotsk studie inneholdt 35 % av alle reir og 39 % av alle gulpeboller plast (Thompson et al. 2020).
Gråmåken kan ha høye nivåer av ulike miljøgifter sammenlignet med andre sjøfugler (Huber et al. 2015). Kvikksølvnivåene hos gråmåke kan være betraktelig lavere enn hos andre store måker (Binkowski et al. 2021, Lemesle et al. 2024), men voksne gråmåker kan også ha så høye konsentrasjoner av kvikksølv at de er over terskelen for å være direkte skadelige (Jouanneau et al. 2022).
Studier av perflouralkylsyrer (PFAS) indikerer at sensitiviteten kan variere mellom arter, og sammenlignet med for eksempel storskarv var gråmåke mer sensitiv (Nordén et al. 2016). Sammenlignet med de nært beslektede sildemåken og svartbak hadde imidlertid gråmåken lavere nivåer (Sebastiano et al. 2021).
Nivåene av bromerte flammehemmere funnet i egg av gråmåke, sildemåke og svartbak nært søppelplasser er svært høye sammenlignet med hva som ellers er funnet hos fugl i Europa; noen av stoffene er spesielt høye hos gråmåke (Tongue et al. 2021).
En sammenligning av rurale og urbane måker indikerte at begge bestandene hadde stor variasjon av miljøgifter, men i de fleste tilfeller inneholdt urbane måker høyere nivåer (Keilen et al. 2022). Næring fra høyere trofisk nivå er generelt assosiert med høyere miljøgiftnivåer (Keilen et al. 2022, Nordén et al. 2016).
Botulisme, sannsynligvis fra anaerob bakterietilvekst på avfallsplasser (Coulson 2015), er dødelig for måker og var hovedgrunnen til en 90 % reduksjon i den irske bestanden (Mitchell et al. 2004).
Gråmåken er også sårbar for utbrudd av fugleinfluensa (Lean et al. 2024).
Obduksjon av døde gråmåker viste en betraktelig høyere ansamling av amyloidose i svenske enn islandske fugler, en feilvikling av proteiner som ansamles i fordøyelsessystemet. Ellers er amyloidose vanlig når ville fugler holdes i fangenskap, selv om man ikke kjenner grunnen til at amyloidose utvikles i noen individer (Jansson et al. 2018).
På verdensbasis er det ikke lov til å sanke egg av gråmåke uten tillatelse (Birdlife International 2021b), mens det i Norge fortsatt er lov til å ta et egg fra hvert kull per sesong, gitt at man har grunneiers tillatelse (FOR-2022-01-21-128). Eggsanking leder imidlertid til forsinket hekking og tidspunkt for hekking påvirker overlevelsen av ungene det første året negativt (Bosman et al. 2016).
Jakt har også blitt fremhevet som en av de viktigste grunnene til at gråmåkebestandene har minket dramatisk (Coulson 2015), men ble forbudt i Norge i 2017.
Gråmåke er en art som er spesielt sårbar for havvindkraftutbygging, siden den ofte flyr på høyder som overlapper med rotorsveipsonen på turbinene (Borkenhagen et al. 2018, Bradbury et al. 2014, Christensen et al. 2004, Cook et al. 2012, Furness et al. 2013, Garthe & Hüppop 2004, Johnston et al. 2014, Krijgsveld et al. 2005, Mendel et al. 2014, Wicikowski et al. 2022). Kompensatorisk tetthetsregulering kan heller ikke kompensere for økt dødelighet fra havvindkraft (Horswill et al. 2017).
Referanser
Anker-Nilssen, T., Barrett, R., Lorentsen, S., Strøm, H., Bustnes, J., Christensen-Dalsgaard, S., Descamps, S., Erikstad, K., Fauchald, P. & Hanssen, S. 2015. SEAPOP. De ti første årene. Nøkkeldokument 2005-2014. SEAPOP, Norsk institutt for naturforskning, Norsk Polarinstitutt & Tromsø Museum–Universitetsmuseet. Trondheim, Tromsø.
Artsdatabanken, S. 2020. Gråtrut (Larus argentatus). https://artfakta.se/. Besøkt 2026.02.27.
Bakken, V., Runde, O. & Tjørve, E. 2003. Norsk Ringmerkingsatlas, vol. 1 lommer–alkefugler. Stavanger Museum, Stavanger.
Barrett, R.T., Lorentsen, S.-H. & Anker-Nilssen, T. 2006. The status of breeding seabirds in mainland Norway. Atlantic Seabirds 8(3): 97–126.
Binkowski, L.J., Fort, J., Brault-Favrou, M., Gallien, F., Le Guillou, G., Chastel, O. & Bustamante, P. 2021. Foraging ecology drives mercury contamination in chick gulls from the English Channel. Chemosphere 267: 128622.
Birdlife International. 2021a. European Red List of Birds. Luxenbourg: Publications Office of the European Union. s 1–72.
Birdlife International. 2021b. Species factsheet: European herring gull Larus argentatus. https://datazone.birdlife.org/species/factsheet/european-herring-gull-larus-argentatus. Besøkt 2026.02.27.
Boertmann, D. & Frederiksen, M. 2016. Status of Greenland populations of great black-backed gull (Larus marinus), lesser black-backed gull (Larus fuscus) and herring gull (Larus argentatus). Waterbirds 39(sp1): 29–35. https://doi.org/10.1675/063.039.sp109
Borkenhagen, K., Corman, A.-M. & Garthe, S. 2018. Estimating flight heights of seabirds using optical rangefinders and GPS data loggers: a methodological comparison. Marine Biology 165(1): 17.
Bosman, D.S., Stienen, E.W. & Lens, L. 2016. Sex, growth rate, rank order after brood reduction, and hatching date affect first‐year survival of long‐lived Herring Gulls. Journal of Field Ornithology 87(4): 391–403. https://doi.org/10.1111/jofo.12177
Bradbury, G., Trinder, M., Furness, B., Banks, A.N., Caldow, R.W.G. & Hume, D. 2014. Mapping Seabird Sensitivity to Offshore Wind Farms. PLoS ONE 9(9): 17. https://doi.org/10.1371/journal.pone.0106366
Bårdsen, B.J. & Bustnes, J.O. 2022. Multiple stressors: negative effects of nest predation on the viability of a threatened gull in different environmental conditions. Journal of Avian Biology 2022(7): e02953. https://doi.org/10.1111/jav.02953
Chapman, B.B., Brönmark, C., Nilsson, J.-Å. & Hansson, L.A. 2011. The ecology and evolution of partial migration. Oikos 120: 1764–1775.
Christensen, T.K., Hounisen, J.P., Clausager, I. & Petersen, I.K. 2004. Visual and radar observations of birds in relation to collision risk at the Horns Rev offshore wind farm. Annual status report 2003. NERI report. National Environmental Research Institute Denmark. https://tethys.pnnl.gov/publications/visual-radar-observations-birds-relation-collision-risk-horns-rev-offshore-wind-farm
Christensen-Dalsgaard, S., Ytrehus, B., Langset, M., Wiig, J.R. & Bærum, K.M. 2022. Seabird beachcast events associated with bycatch in the Norwegian purse seine fishery. Marine Environmental Research 177: 105625. https://doi.org/https://doi.org/10.1016/j.marenvres.2022.105625
Cook, A., Johnston, A., Wright, L. & Burton, N. 2012. A review of flight heights and avoidance rates of birds in relation to offshore wind farms. BTO Research Report
Coulson, J.C. 2015. Re-evaluation of the role of landfills and culling in the historic changes in the Herring Gull (Larus argentatus) population in Great Britain. Waterbirds 38(4): 339–354. https://doi.org/10.1675/063.038.0411
del Hoyo, J., Elliot, A. & Sargatal, J. 1992. Handbook of the birds of the world. Lynx Edicions, Barcelona.
Dunlop, K.M., Wipfli, M., Muladal, R. & Wierzbinski, G. 2021. Terrestrial and semi-aquatic scavengers on invasive Pacific pink salmon (Oncorhynchus gorbuscha) carcasses in a riparian ecosystem in northern Norway. Biological Invasions 23(4): 973–979.
Ellis, J.C. & Good, T.P. 2006. Nest Attributes, Aggression, and Breeding Success of Gulls in Single and Mixed Species Subcolonies. The Condor: Ornithological Applications 108(1): 211–219. https://doi.org/10.1093/condor/108.1.211
Enners, L., Schwemmer, P., Corman, A.M., Voigt, C.C. & Garthe, S. 2018. Intercolony variations in movement patterns and foraging behaviors among herring gulls (Larus argentatus) breeding in the eastern Wadden Sea. Ecology and Evolution 8(15): 7529–7542.
Fauchald, P., Anker-Nilssen, T., Barrett, R., Bustnes, J.O., Bårdsen, B.-J., Christensen-Dalsgaard, S., Descamps, S., Engen, S., Erikstad, K.E. & Hanssen, S.A. 2015. The status and trends of seabirds breeding in Norway and Svalbard NINA Rapport 1151. Norsk institutt for naturforskning.
Foster, S., Swann, R.L. & Furness, R.W. 2017. Can changes in fishery landings explain long-term population trends in gulls? Bird Study 64(1): 90–97. https://doi.org/10.1080/00063657.2016.1274287
Furness, R.W., Wade, H.M. & Masden, E.A. 2013. Assessing vulnerability of marine bird populations to offshore wind farms. Journal of environmental management 119: 56–66.
Garthe, S. & Hüppop, O. 2004. Scaling possible adverse effects of marine wind farms on seabirds: developing and applying a vulnerability index. Journal of applied Ecology 41(4): 724–734.
Götmark, F. 1982. Coloniality in five Larus gulls: a comparative study. Ornis Scandinavica: 211–224.
Helberg, M., Molværsmyr, S. & Ranke, P.S. 2023. Variasjon i hekketidspunkt for ærfugl, måker og terner fra svenskegrensen til og med Agder i perioden 2013-2022 Rapport 3-2023. BirdLife Norge
Horswill, C., O’Brien, S.H. & Robinson, R.A. 2017. Density dependence and marine bird populations: are wind farm assessments precautionary? Journal of Applied Ecology 54(5): 1406–1414. https://doi.org/10.1111/1365-2664.12841
Huber, S., Warner, N.A., Nygård, T., Remberger, M., Harju, M., Uggerud, H.T., Kaj, L. & Hanssen, L. 2015. A broad cocktail of environmental pollutants found in eggs of three seabird species from remote colonies in Norway. Environmental toxicology and chemistry 34(6): 1296–1308.
Hudson, A. & Furness, R. 1989. The behaviour of seabirds foraging at fishing boats around Shetland. Ibis 131(2): 225–237.
Hyvärinen, E., Juslén, A., Kemppainen, E., Uddström, A. & Liukko, U.-M. 2019. The 2019 Red list of Finnish species. Ympäristöministeriö & Suomen ympäristökeskus, Helsinki.
Jansson, D.S., Bröjer, C., Neimanis, A., Mörner, T., Murphy, C.L., Otman, F. & Westermark, P. 2018. Post mortem findings and their relation to AA amyloidosis in free-ranging Herring gulls (Larus argentatus). PloS one 13(3): e0193265.
Johnston, A., Cook, A.S.C.P., Wright, L.J., Humphreys, E.M. & Burton, N.H.K. 2014. Modelling flight heights of marine birds to more accurately assess collision risk with offshore wind turbines. Jounal of Applied Ecology 51: 31–41.
Jouanneau, W., Sebastiano, M., Rozen-Rechels, D., Harris, S.M., Blévin, P., Angelier, F., Brischoux, F., Gernigon, J., Lemesle, J.-C. & Robin, F. 2022. Blood mercury concentrations in four sympatric gull species from South Western France: insights from stable isotopes and biologging. Environmental Pollution 308: 119619.
Keilen, E.K., Borgå, K., Thorstensen, H.S., Hylland, K., Helberg, M., Warner, N., Bæk, K., Reiertsen, T.K. & Ruus, A. 2022. Differences in trophic level, contaminant load, and DNA damage in an urban and a remote Herring Gull (Larus argentatus) breeding colony in coastal norway. Environmental toxicology and chemistry 41(10): 2466–2478.
Kentie, R., Shamoun‐Baranes, J., Spaans, A.L. & Camphuysen, K. 2023. Spatial patterns in age‐and colony‐specific survival in a long‐lived seabird across 14 contrasting colonies. Ibis 165(1): 82–95.
Krijgsveld, K., Lensink, R., Schekkerman, H., Wiersma, P., Poot, M.J., Meesters, E. & Dirksen, S. 2005. Baseline studies North Sea wind farms: fluxes, flight paths and altitudes of flying birds 2003-2004. Bureau Waardenburg
Lean, F.Z., Falchieri, M., Furman, N., Tyler, G., Robinson, C., Holmes, P., Reid, S.M., Banyard, A.C., Brown, I.H. & Man, C. 2024. Highly pathogenic avian influenza virus H5N1 infection in skua and gulls in the United Kingdom, 2022. Veterinary Pathology 61(3): 421–431.
emesle, P., Carravieri, A., Poiriez, G., Batard, R., Blanck, A., Deniau, A., Faggio, G., Fort, J., Gallien, F. & Jouanneau, W. 2024. Mercury contamination and potential health risk to French seabirds: A multi-species and multi-site study. Science of the Total Environment 952: 175857.
Lloyd, C.S., Tasker, M.L. & Partridge, K. 1991. The status of seabirds in Britain. T. & A.D. Poyser, London, UK.
Markert, A., Esser, W., Frank, D., Wehrmann, A. & Exo, K.-M. 2013. Habitat change by the formation of alien Crassostrea-reefs in the Wadden Sea and its role as feeding sites for waterbirds. Estuarine, Coastal and Shelf Science 131: 41–51.
Melendez-Arteaga, J., Bregnballe, T. & Frederiksen, M. 2022. Identifying spatial drivers of long-term population growth in three large gull species: the importance of mink farms and urban areas. Avian Conservation and Ecology 17(2). https://doi.org/10.5751/ACE-02233-170210
Mendel, B., Kotzerka, J., Sommerfeld, J., Schwemmer, H., Sonntag, N. & Garthe, S. 2014. Effects of the alpha ventus offshore test site on distribution patterns, behaviour and flight heights of seabirds. I Ecological Research at the Offshore Windfarm alpha ventus. Springer. S. 95–110.
Mitchell, P.I., Newton, S.F., Ratcliffe, N. & Dunn, T.E. 2004. Seabird populations of Britain and Ireland: results of the Seabird 2000 census (1998-2002). T and AD Poyser, London.
Nager, R.G. & O’Hanlon, N.J. 2016. Changing numbers of three gull species in the British Isles. Waterbirds 39(sp1): 15–28. https://doi.org/10.1675/063.039.sp108
Nilsson, A.L.K., Breistøl, A., Helberg, M. & Molværsmyr, S. 2025. Fungerer vern og ferdselsrestriksjoner for sjøfuglene? Bestandsutvikling, hekkesuksess og rekruttering hos gråmåke i og utenfor sjøfuglreservatene NINA Rapport 2687. Norsk institutt for naturforskning
Nordström, M., Högmander, J., Laine, J., Nummelin, J., Laanetu, N. & Korpimäki, E. 2003. Effects of feral mink removal on seabirds, waders and passerines on small islands in the Baltic Sea. Biological Conservation 109(3): 359–368.
Nordén, M., Berger, U. & Engwall, M. 2016. Developmental toxicity of PFOS and PFOA in great cormorant (Phalacrocorax carbo sinensis), herring gull (Larus argentatus) and chicken (Gallus gallus domesticus). Environmental Science and Pollution Research 23(11): 10855–10862.
Olsen, K. 2025. Overvåking av hekkende sjøfugl i Vest-Agders sjøfuglreservater. BirdLife Norge, avd Vest-Agder
Ottosson, U., Wirdheim, A., Elmberg, J., Green, M., Gustafsson, R., Haas, F., Liljebäck, N., Lindström, Å., Nilsson, L., Ottvall, R., Svensson, M., Svensson, S. & Tjernberg, M. 2025. Fåglarna i Sverige – antal och förekomst. 2. utg. Avium förlag AB.
O’Hanlon, N.J., McGill, R.A. & Nager, R.G. 2017. Increased use of intertidal resources benefits breeding success in a generalist gull species. Marine Ecology Progress Series 574: 193–210. https://doi.org/10.3354/meps12189
O’Hanlon, N.J. & Nager, R.G. 2018. Identifying habitat-driven spatial variation in colony size of Herring Gulls Larus argentatus. Bird Study 65(3): 306–316. https://doi.org/10.1080/00063657.2018.1518970
O’Hanlon, N.J., Thaxter, C.B., Burton, N.H., Grant, D., Clark, N.A., Clewley, G.D., Conway, G.J., Barber, L.J., McGill, R.A. & Nager, R.G. 2022. Habitat selection and specialisation of Herring Gulls during the non-breeding season. Frontiers in Marine Science 9: 816881.
Pennycott, T.W., Grant, D., Leopold, M.F. & Nager, R.G. 2020a. Ragworms and other marine food items in the diet of Herring Gulls Larus argentatus breeding on Lady Isle, Firth of Clyde, Scotland. Bird Study 67(3): 402–408. https://doi.org/10.1080/00063657.2020.1869697
Pennycott, T.W., Grant, D. & Nager, R.G. 2020b. Earthworms in the diet of Herring Gulls Larus argentatus breeding on an off-shore island. Bird Study 67(1): 131–134.
Pezy, J.P., Pezy, A. & Raoux, A. 2022. The invasive species Rangia cuneata: A new food source for herring gull (Larus argentatus)? Ecosphere 13(4): e4058. https://doi.org/10.1002/ecs2.4058
Ratcliffe, N., Craik, C., Helyar, A., Roy, S. & Scott, M. 2008. Modelling the benefits of American Mink Mustela vison management options for terns in west Scotland. Ibis 150: 114–121.
Reiertsen, T.K., Breistøl, A., Hagestad, S., Helberg, M., Jacobsen, K.-O., Molværsmyr, S. & Nilsson, A.L.K. 2025. Sameksistens med urbane måker og terner – kunnskapsbaserte råd om tiltak og tilrettelegging NINA Temahefte 96. Norsk institutt for naturforskning
Rock, P. 2005. Urban gulls: problems and solutions. British Birds 98: 338–355.
Schonhowd, L.G. 2026. A continuous-time capture-recapture analysis of three gull species in the inner Oslo fjord. MSc. University of Oslo, Oslo
Sebastiano, M., Jouanneau, W., Blévin, P., Angelier, F., Parenteau, C., Gernigon, J., Lemesle, J., Robin, F., Pardon, P. & Budzinski, H. 2021. High levels of fluoroalkyl substances and potential disruption of thyroid hormones in three gull species from South Western France. Science of the Total Environment 765: 144611.
Semashko, V., Semashko, E., Tertitski, G., Cherenkov, A., Shutova, E. & Tolmacheva, E. 2023. Long-term population dynamics of seabirds breeding in the western part of the White Sea. Biology Bulletin 50(7): 1464–1476.
Shimmings, P. & Øien, I. 2015. Bestandsestimater for norske hekkefugler. NOF-rapport 2015 2: 268.
Sotillo, A., Depestele, J., Courtens, W., Vincx, M. & Stienen, E.W. 2014. Consumption of discards by Herring Gulls Larus argentatus and Lesser Black-backed Gulls Larus fuscus off the Belgian coast in the breeding season. Ardea 102(2): 195–206.
Steenweg, R.J., Ronconi, R.A. & Leonard, M.L. 2011. Seasonal and age-dependent dietary partitioning between the Great Black-backed and Herring gulls. Condor 113(4): 795–805.
Svensson, M., Grahn, J., Green, M., Lignell, N., Nilsson, J. & Tjernberg, M. 2023–2025. Rödlista 2025 – expertkommittén för fåglar. SLU Artsdatabanken, Uppsala. https://artfakta.se/taxa/102966/rodlistning.
Thompson, D.L., Ovenden, T.S., Pennycott, T. & Nager, R.G. 2020. The prevalence and source of plastic incorporated into nests of five seabird species on a small offshore island. Marine pollution bulletin 154: 111076. https://doi.org/10.1016/j.marpolbul.2020.111076
Tongue, A.D., Fernie, K.J., Harrad, S., Drage, D.S., McGill, R.A. & Reynolds, S.J. 2021. Interspecies comparisons of brominated flame retardants in relation to foraging ecology and behaviour of gulls frequenting a UK landfill. Science of the Total Environment 764: 142890.
van den Bosch, M., Baert, J.M., Müller, W., Lens, L. & Stienen, E.W. 2019. Specialization reduces foraging effort and improves breeding performance in a generalist bird. Behavioral Ecology 30(3): 792–800. https://doi.org/10.1093/beheco/arz016
van Donk, S., Camphuysen, K.C., Shamoun‐Baranes, J. & van der Meer, J. 2017. The most common diet results in low reproduction in a generalist seabird. Ecology and Evolution 7(13): 4620–4629. https://doi.org/10.1002/ece3.3018
Van Donk, S., Shamoun-Baranes, J., Van Der Meer, J. & Camphuysen, K.C. 2019. Foraging for high caloric anthropogenic prey is energetically costly. Movement Ecology 7(1): 17.
Van Donk, S., Shamoun‐Baranes, J., Bouten, W., Van Der Meer, J. & Camphuysen, K.C. 2020. Individual differences in foraging site fidelity are not related to time‐activity budgets in Herring Gulls. Ibis 162(2): 429–445. https://doi.org/10.1111/ibi.12697
Väänänen, V., Nummi, P., Rautiainen, A., Asanti, T., Huolman, I., Mikkola-Roos, M., Nurmi, J., Orava, R. & Rusanen, P. 2007. The effect of raccoon dog Nyctereutes procyonoides removal on waterbird breeding success. Suomen Riista 53: 49–63.
Wicikowski, A., Zein, B., Goddard, B., Sweeney, S., Coppack, T. & McGovern, S. 2022. Collection of seabird flight height data at an operational offshore wind farm using aircraft mounted LiDAR. Final report. Marine Scotland