Havhest
Engelsk navn:
Northern Fulmar
Vitenskapelig navn:
Fulmarus glacialis
ForfatterE:
Sist oppdatert:
Beskrivelse
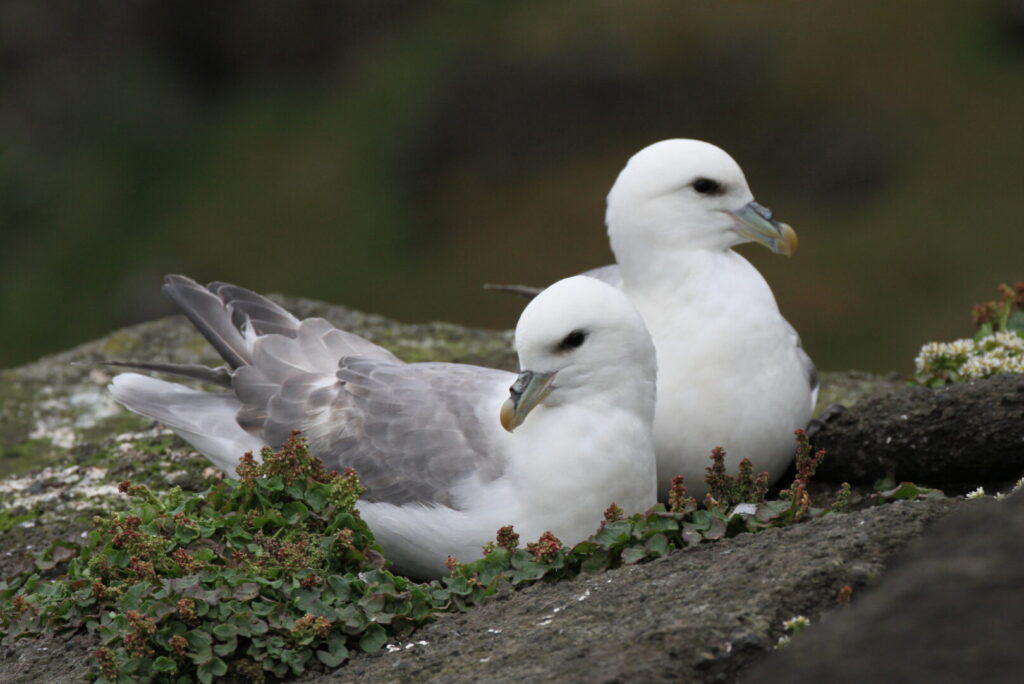
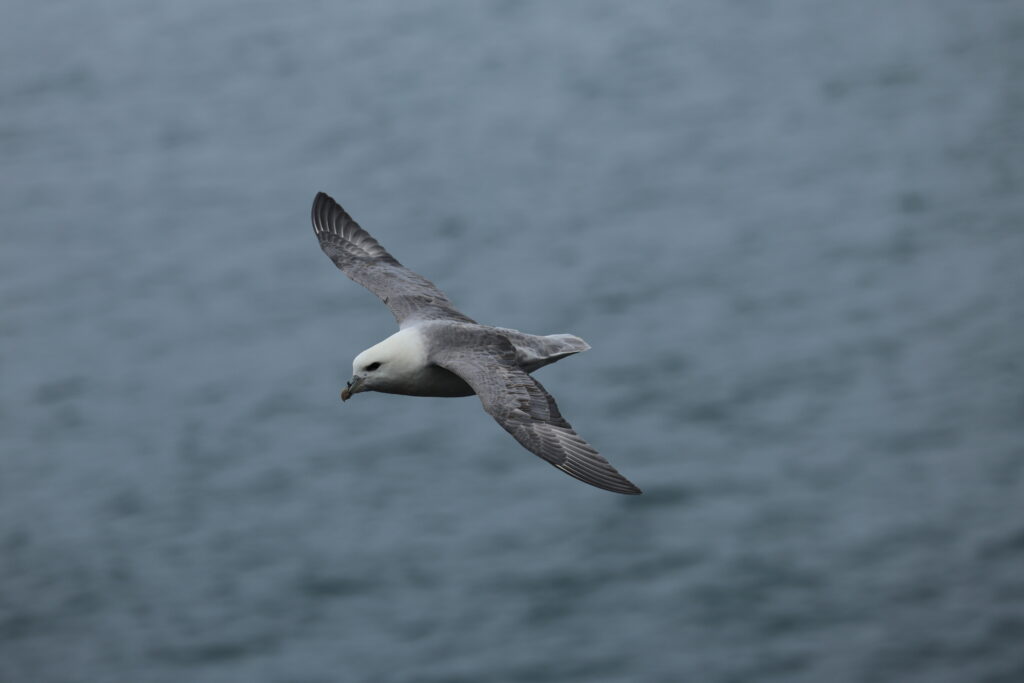
Havhest er en mellomstor stormfugl (Procellariidae), med lange og relativt smale vinger og et kraftig nebb med tubeformete neserør.
Fjærdrakten varierer fra lys til mørkere grå. Det finnes to underarter i Atlanterhavet; F. g. glacialis i de høy-arktiske områdene, og F. g. auduboni i de lav-arktiske og boreale områdene, men underartene er ofte vanskelig å skille ut fra størrelse og fargeforskjeller (Norsk Polarinstitutt).
Havhest er 45–50 cm lang med et vingespenn på 102–112 cm. Hunner veier mellom 450 og 850 gram, og hanner mellom 550 og 1050 gram (Mallory et al. 2020).
Relevante lenker:
Rødlistestatus for havhest
I Europa har havhestbestanden gått ned opptil 50-79 % i perioden 1985-2017 (BirdLife International 2018), og havhest er derfor kategorisert som Sårbar («VU», Vulnerable) på den Europeiske rødlisten fra 2021 (BirdLife International 2022). I Fastlands-Norge vurderes havhest som Sterkt Truet («EN», Endangered) på grunn av lave bestandstall og stor nedgang siden starten av 2000-tallet. Større og mer stabile bestandstall på Svalbard og Jan Mayen gjør at bestandene der vurderes som Livskraftige (Shimmings et al. 2015, Stokke et al. 2021a).
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Havhest har en spredt utbredelse. De tilbringer mesteparten av tiden på åpent hav eller i avsidesliggende kolonier, og arten er derfor vanskelig å telle. Dette fører til stor usikkerhet i bestandsestimatene.
Manglende kartlagte områder og kolonier gjør de nasjonale bestandsestimatene svært usikre (Fauchald et al. 2015), og de reelle bestandstallene er sannsynligvis høyere, spesielt på Svalbard (Anker-Nilssen et al. 2015).
Nasjonalt
| Region/område | Estimert antall (par) | År | Referanse |
|---|---|---|---|
| Svalbard | 70 796 | ||
| Bjørnøya | 25 134 | 2024 | SEAPOP 2024 |
| Øvrige områder | 45 662 | 2024 | SEAPOP 2024 |
| Jan Mayen | 125 552 | 2024 | SEAPOP 2024 |
| Fastlandet | 170 | ||
| Barentshavet | 32 | 2024 | SEAPOP 2024 |
| Norskehavet | 40 | 2024 | SEAPOP 2024 |
| Nordsjøen | 98 | 2024 | SEAPOP 2024 |
| Norge totalt | 196 518 |
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 300 000–400 000 | Individer | Synkende (kortsiktig) | 2018 | Environment and Climate Change Canada 2019 |
| England | 4 903 | AOS | 2015 – 2021 | Burnell et al. 2023 | |
| Færøyene | 600 000 | Par | Varierende (kortsiktig) | 1995 | BirdLife International/ European Bird Census Council 2000; J. Danielsen per. kom. |
| Grønland | 160 000 | Individer | 1992 – 2010 | DCE, GINR 2022 | |
| Island | 1 200 000 | Par | Synkende (Nordøst Island) | 2016 | Kolbeinsson 2023 (trend Nordøst island); Skarphéðinsson et al. 2016 |
| Nord-Irland (UK) | 2 566 | AOS | 2015 – 2021 | Burnell et al. 2023 | |
| Republikken Irland | 32 131 | AOS | 2015 – 2021 | Burnell et al. 2023 | |
| Russland | 26 000 | Par | 1980 – 1990 | BirdLife International/ European Bird Census Council 2000 | |
| Skottland | 309 545 | AOS | 2015 – 2021 | Burnell et al. 2023 | |
| Wales | 2 492 | AOS | 2015 – 2021 | Burnell et al. 2023 | |
| Globalt | 7 000 000 | Par | Økende (kortsiktig) | 2016 | Carboneras et al. 2016 |
AOS=Apparently Occupied Sites
Hekkeutbredelse
Globalt hekker havhest i nordlige og arktiske strøk både i Stillehavet og Atlanterhavet (Mallory et al. 2020).
I Norge hekker havhest spredt i fuglefjell og sjøfuglkolonier mest på Svalbard og Jan Mayen, med kun noen få par som hekker på fastlandet (Fauchald et al. 2015, Stokke et al. 2021b).
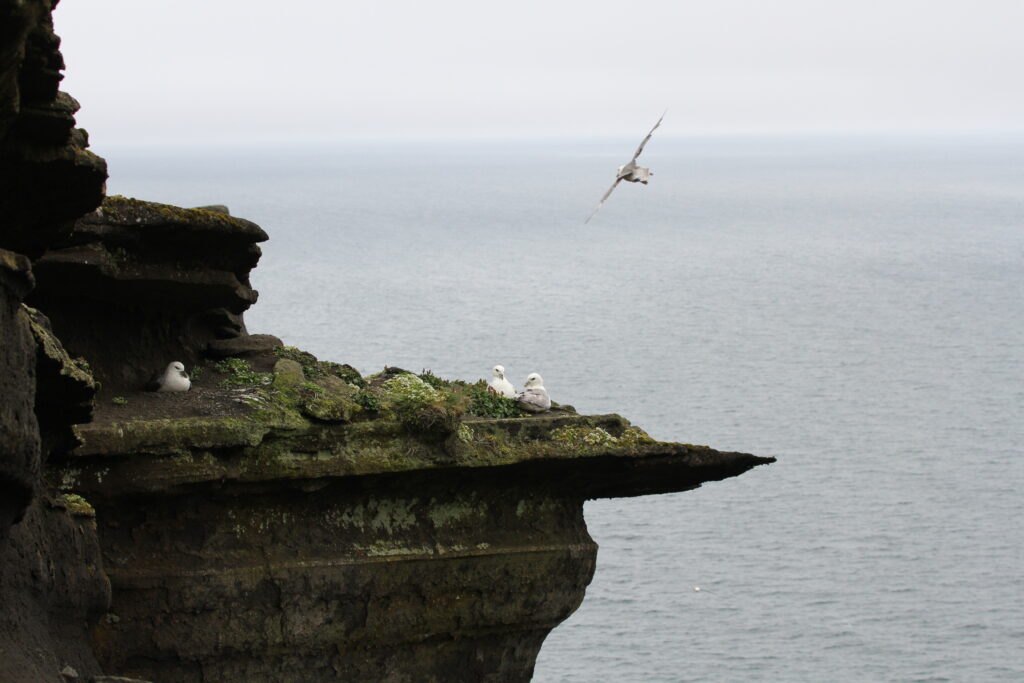
Havhest hekker som regel i kolonier i bratte klipper og bergvegger, ofte på smale hyller og, sjeldnere, i bratte jordskråninger der underlaget tillater det (Mallory et al. 2020). Reiret er vanligvis en enkel grop på bakken, eventuelt svakt foret med stein eller vegetasjon.
Selv om hekking på klipper er typisk, kan arten unntaksvis hekke på flatere mark (f.eks. på Bjørnøya, Norsk Polarinstitutt) eller på steder nær menneskelig aktivitet (Mallory et al. 2020).
På Svalbard hekker havhest ofte inne i fjorder i løse kolonier, gjerne sammen med andre arter. En del hekker også på nunataker i innlandet (Norsk Polarinstitutt). I hekkesesongen har havhesten en bred, sirkumpolar utbredelse på den nordlige halvkule med konsentrasjoner i både Nord-Atlanterhavet og Nord-Stillehavet (Norsk Polarinstitutt).
Arten hekker primært i subarktiske og arktiske områder, men også i mer tempererte nordlige kyststrøk, hvor havstrømmer og geografi gir egnede næringsforhold og klippehabitat for kolonier (Mallory et al. 2020).
Den nordlige underarten F. g. glacialis dominerer de arktiske hekkeområdene, mens sør-atlantiske og tempererte bestander ofte er F. g. auduboni, inkludert de som hekker lengre sør i Nord-Atlanteren og rundt Island, Storbritannia og Nord-Frankrike (Norsk Polarinstitutt).
Hekkebestander av havhest finnes langs kystene fra det nordøstlige Canada, Grønland, Island og østover til Skottland, Færøyene, Nord-Frankrike (Bretagne), og Norge (inkl. Svalbard og Jan Mayen). Havhest hekker også nord i Stillehavet, på Kurilene og langs kysten rundt Beringhavet, med kolonier både i Øst-Russland og i Alaska.
I Europa er hekkebestanden størst på Island, Færøyene, og i Norge, og mer spredt men fortsatt betydelig, i Irland og Storbritannia, Frankrike (Bretagne), samt på Novaja Semlja og Franz Josef Land i Russland (Mallory et al. 2020).
I Norge hekker havhest i varierende omfang i veldig små kolonier langs kysten på fastlandet, med de største koloniene på Svalbard og Jan Mayen (Stokke et al. 2021b).
Kart: Hekkeutbredelse i ulike deler av Norge. Boblenes størrelse representerer estimert bestandsstørrelse.
Les mer…
Her oppgis våre siste estimater av hekkebestander for denne arten. Vi har tatt utgangspunkt i siste telling fra hver koloni og brukt bestandsutviklingen i regionen til å beregne dagens hekkebestand.
Trekk- og vinterområder
Utenfor hekkesesongen er havhesten en sterkt havbundet art som primært tilbringer overvintringsperioden pelagisk og ofte langt til havs (Stokke et al. 2021b). Nordlige bestander har en tendens til å trekke lengre enn de sørlige bestandene og kan bevege seg sørover når havområder fryser til om vinteren, mens sørligere bestander viser større spredning i arealbruk og ikke nødvendigvis trekker til varmere farvann (Mallory et al. 2020).
Unge havhest kan flytte seg på tvers av oseaner og vandrer generelt lengre enn de mer stedtro voksne, men det finnes svært lite data om ungfuglenes trekkmønstre og arealbruk (Mallory et al. 2020).
Voksne individer fra de Islandske bestandene trekker til store pelagiske områder i Nordvest-Atlanteren i oktober-desember, mens bestander fra Storbritannia og Irland bruker Nordsjøen og Norskehavet i mye større grad i samme perioden (Fauchald et al. 2021).
Bestandene fra Svalbard trekker først til Barentshavet og så til Norskehavet og Grønlandshavet (Fauchald et al. 2021).
Bestander som hekker på Jan Mayen antas tilsvarende å benytte Norskehavet, Grønlandshavet, og tilgrensende nordøst-atlantiske havområder utenfor hekkesesongen (Norsk Polarinstitutt).
Havhest som hekker i Fastlands-Norge kan gjøre lange forflytninger utenom hekkesesongen. Sporingsdata (SEATRACK) viser at fugler fra Sør-Norge (Rogaland) trekker vestover etter hekking og overvintrer hovedsakelig i Labradorhavet mellom Grønland og Canada, og enkelte individer oppholder seg også i området rundt den midtatlantiske ryggen.
Arealbruk i ulike årstider basert på sporingsinformasjon fra individer i utvalgte lokaliteter. Velg hvilke årstider du vil se arealbruken for i øvre venstre hjørne.
Les mer…
Kartet viser kjernetetthetsfordelinger (kernel distributions) lagt over alle tilgjengelige datapunkter for valgt årstid. Disse er basert på individuelle sporingsdata fra hekkende fugler på lokaliteter angitt med sirkler (svart sirkel = informasjon tilgjengelig for høst, vinter og vår; hvit sirkel = informasjon tilgjengelig for sommer).
Økende fargeintensitet på polygonene representerer hhv 25 %, 50 % og 75 % sannsynlighetskonturer for disse funksjonene. Med andre ord viser kartene sannsynligheten for at fugler av denne arten befinner seg i området, basert på de tilgjengelige dataene.
For å zoome: Scroll med musa. For å panorere kartet: Hold inne venstre musknapp og dra. For å endre klodens vinkling: Hold inne høyre musknapp og dra.
Kilde for høst-, vinter- og vår-data er SEATRACK. Kilde for sommerdata er SEAPOP.
Bestandsutvikling
Globalt vurderes totalbestanden av havhest som økende, men utviklingen varierer svært mye regionalt (BirdLife International 2018). Den europeiske bestanden er per i dag estimert til 6,35–7,66 millioner voksne individer, men det er dokumentert en kraftig nedgang, på 50-79% siden midten av 1980-tallet (BirdLife International 2018, 2022).
I Norge er det en markant forskjell i utviklingen i havhestbestanden mellom Fastlands-Norge og Svalbard og Jan Mayen. Langs fastlandet har havhest bestanden økt, først sakte mellom 1980 og 1998 opp til ca. 500 par, og så kraftig mellom 1998 og 2003 opp til ca. 3400 par, før den gikk kraftig tilbake til under 500 par i 2010 (Fauchald et al. 2015).
Hekkebestanden i Fastlands-Norge ligger nå på 170 hekkende par, noe som trolig utgjør mindre enn 5% av hekkebestanden fra starten av 2000-tallet (Shimmings et al. 2015, Stokke et al. 2021b).
De fleste store havhest kolonier, som for eksempel Runde på Sunnmøre, er blitt sterkt redusert på fastlandet siden starten av 2000-tallet, og har ikke hatt hekkende fugl i de siste årene (Stokke et al. 2021b).
Det er en stor bestand av havhest på Svalbard, men overvåkingsdataen indikerer geografisk variasjon, med stabil bestandsutvikling på Spitsbergen, men betydelig nedgang på Bjørnøya (Descamps et al. 2021) og Jan Mayen (Fayet et al. 2025).
Estimerte årlige hekkebestander på nøkkellokalitetene. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Estimerte årlige hekkebestander. Superskript ts betyr at estimatet er et totalestimat for hele populasjonen innenfor valgte nøkkellokalitet, og i betyr estimat for størrelsen av en hekkekoloni/lokalitet som er del av en større bestand i valgte nøkkellokalitet. For noen arter og kolonier er tallene basert på en totaltelling, mens andre estimat er basert på telling av prøvefelt (deler av en bestand), hvorav total hekkbestand er beregnet vha. utvikling i prøvefelt og tidligere tall på total hekkebestand.
Demografi
Overlevelse
Havhesten har en livshistorie som er karakteristisk for langt-levende sjøfugler, med lav årlig reproduksjonsrate, høy voksenoverlevelse, og sen kjønnsmodning. I Norge er den høyeste levealderen registrert for havhest 26 år, mens en levealder på over 50 år er blitt rapportert i utlandet (Norsk Polarinstitutt). Voksne havhest blir som regel kjønnsmodne etter åtte til ni år (Norsk Polarinstitutt). Bestandsutviklingen er derfor i større grad påvirket av endringer i voksenoverlevelse enn av variasjon i hekkesuksess (Mallory et al. 2020).
Årlige overlevelsesrater med tilhørende konfidensintervall. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Overlevelsesrate og konfidensintervall er oppgitt for hvert år. Overlevelserate er basert på «fangst-gjenfangst»-data som blir innhentet på utvalgte nøkkellokaliteter hvert år: Et utvalg individuelle fugler blir merket med hver sin ring med unik kode, og basert på observasjoner av disse individene fra år til år kan en beregne gjennomsnittlig årlig overlevelse over samme tidsperiode.
Reproduksjon
Kullstørrelsen er normalt ett egg. Begge kjønn deltar i rugingen, som varer i omtrent 47–49 dager (Mallory et al. 2020). Ungene forlater kolonien når de er flygedyktige, omtrent 45-53 dager etter klekking (Lorentsen 2015).
Beregnet årlig reproduksjon på nøkkellokalitetene. Enhet avhenger av art og lokalitet. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Hekkesuksess er definert på flere ulike måter avhengig av utvalgte arters livshistorie og overvåkingsmetodikk for de ulike nøkkellokalitetene. Alkefuglene (bortsett fra teist), i tillegg til havhest og havsule, legger kun ett egg pr par, mens de resterende har en kullstørrelse fra to og oppover. For de kolonihekkende artene, f.eks. lunde og havsule, er hekkesuksess målt på et utvalg av populasjonen, og de årlige estimatene har derfor et konfidensintervall som beskriver usikkerheten på estimatet. For noen arter/områder er hekkesuksess målt på samtlige individ i populasjonen, og det er derfor ikke noe usikkerhet knyttet til de årlige verdiene av hekkesuksess.
Næringsvalg
Havhest er en opportunistisk, pelagisk overflatebeitende art som spiser et bredt spekter av marine byttedyr (fisk, krepsdyr, og bløtdyr, men også åtsler). I tillegg utnytter havhest matressurser knyttet til menneskelige aktiviteter, som for eksempel fiskeavfall fra fiskeriene (Mallory et al. 2020, Stokke et al. 2021b). Havhest oppholder seg ofte over dype havområder der den finner mat ved hjelp av en godt utviklet luktesans (Verheyden et al. 1994).
På Svalbard er dietten til havhest dominert av pelagiske byttedyr som kan tas ved overflaten, som blekksprut, børstemark, krepsdyr og småfisk. Lodde Mallotus villosus er en nøkkelressurs for havhest som hekker på Bjørnøya (Norsk Polarinstitutt). En detaljert studie fra Bjørnøya fant at dietten til havhest i løpet av ungeperioden var nesten helt fiskebasert, der lodde utgjorde 87,0 % av føden og torsk Gadus morhua 9.7 % (Cherel et al. 2001).
Havhest kan utnytte utkast fra fiskeri og andre menneskelige aktiviteter på havet, og den historiske økningen i enkelte nordøst-atlantiske bestander på 1900 tallet kan ha sammenheng med mattilførsel, bl.a. hvalrester og senere avfall fra fiskebåter (Norsk Polarinstitutt). Samtidig viser analyser fra Nordsjøen at fiskeriavfall ikke nødvendigvis er den viktigste energikilden til havhest, og at havhestens utbredelse i Nordsjøen i større grad kan forklares av oseanografiske forhold enn av fiskeriaktivitet alene (Camphuysen et al. 1997a, Phillips et al. 1999). Det er likevel liten tvil om at fiskeriaktivitet tiltrekker seg havhest, og stor grad av overlapp mellom fiskeri og havhest er blitt påvist i Nordøst-Atlanteren (Dupuis et al. 2021, Darby et al. 2023).
Jan Mayen huser noen av Norges største havhestkolonier, og dietten antas i hovedsak å følge det samme overordnede mønsteret som for andre nordøst-atlantiske bestander, men det finnes ingen spesifikk opplysning for dette området.
Påvirkningsfaktorer og trusler
Havhest påvirkes globalt av flere menneskelige- og miljøfaktorer knyttet til havet. De best dokumenterte påvirkningene omfatter bifangst i fiskerier, plastforurensning, kjemikalie- og oljeforurensning, predasjon, samt globale klimadrevne endringer i marine økosystemer. Forurensing fra oljesøl og plast, samt predasjon på reir i hekkekolonier er potensielt viktige påvirkningsfaktorer på bestandsnivå i Fastlands-Norge (Kvinnesland 2014, Fauchald et al. 2015, Stokke et al. 2021b).
Havhest samler seg ofte i stort antall rundt fiskefartøy for å beite på agn, avfall og utkast (Camphuysen et al. 1997b). Dette gjør arten svært utsatt for å bli tatt som bifangst i fiskeriene, og bifangst i line-, garn- og trålfiskerier er dokumentert som en kilde til dødelighet i mange havområder (Žydelis et al. 2013, Bærum et al. 2019). Det er estimert at mer enn 20 000 havhest årlig tas som bifangst i Nordøst-Atlanteren (Ramírez et al. 2024). I norske havgående linefiskerier er det funnet romlig og sesongmessig variasjon i risiko for bifangst av havhest, med størst risiko for at havhest blir tatt som bifangst i hekkeperioden (Clegg et al. 2024).
Det er dokumentert svært høy forekomst av plast i mageinnhold hos strandede havhest i Nordsjøen (van Franeker et al. 2011), og flere studier har funnet store mengder av plast i magesekkene til både voksne og ungfugler fra Svalbard og Færøyene (Trevail et al. 2015, Collard et al. 2022). Det er imidlertid uklart i hvor stor grad plastinnhold kan føre til kontaminering av andre typer vev i havhest (Ask et al. 2016, Herzke et al. 2016). Oljeutslipp og kronisk oljebasert forurensning representerer en vedvarende risiko, særlig i områder med høy skipstrafikk og offshoreaktivitet som i Nordsjøen, selv om det har vært en tydelig fallende trend i antall strandede fugler som var tilgriset med olje mellom 1978 og 2020 (Camphuysen 2022).
Predasjon fra både fugl (f.eks. havørn, polarmåke) og pattedyr (f.eks. rotter, katt og rødrev) kan redusere hekkesuksessen til havhest, særlig der reirplassene er mer eksponerte (Mallory et al. 2011). På Karmøy i Rogaland har hekkebestanden av havhest gått kraftig ned på grunn av predasjon av både voksne og ungfugler, mest av havørn men også vandrefalk og ravn (Kvinnesland 2014).
Klimadrevne endringer i Barentshavet og Norskehavet kan påvirke hekkesuksess og voksenoverlevelse hos de arktiske bestandene av havhest. For eksempel kan variasjon i sjøisutbredelse og økologiske forhold påvirke næringstilgang og hekkesuksess hos arten (Gaston et al. 2005). På større skala kan klimaendringer føre til redusert tilgjengelighet av byttedyr, og dermed påvirke demografiske parametere, særlig gjennom effekter på reproduksjon og voksenoverlevelse (Descamps et al. 2017).
Referanser
Anker-Nilssen, T., R. T. Barrett, S.-H. Lorensten, J. O. Bustnes, S. Christensen-Dalsgaard, S. Descamps, K. E. Erikstad, P. Fauchald, S. A. Hanssen, E. Lorentzen, B. Moe, T. K. Reiertsen, and G. H. Systad. 2015. SEAPOP. De ti første årene. Page 58. Norwegian Institute for Nature Research (NINA).
Ask, A., T. Anker-Nilssen, D. Herzke, A. Trevail, J. A. van Franeker, and G. W. Gabrielsen. 2016. Contaminants in northern fulmars (Fulmarus glacialis) exposed to plastic. Nordisk Ministerråd.
Bærum, K. M., T. Anker-Nilssen, S. Christensen-Dalsgaard, K. Fangel, T. Williams, and J. H. Vølstad. 2019. Spatial and temporal variations in seabird bycatch: Incidental bycatch in the Norwegian coastal gillnet-fishery. PLOS ONE 14:e0212786.
BirdLife International. 2018. IUCN Red List of threatened species: Fulmarus glacialis . http://dx.doi.org/10.2305/IUCN.UK.2018-2.RLTS.T22697866A132609419.en.
BirdLife International. 2022. European red list of birds 2021. Publications Office of the European Union.
Camphuysen, K. C. J. 2022. Mission accomplished: chronic North Sea oil pollution now at acceptable levels, with common guillemots Uria aalge as sentinels. Seabird 34:1–32.
Camphuysen, K. (C. J. ), and S. Garthe. 1997. An evaluation of the distribution and scavenging habits of northern fulmars (Fulmarus glacialis) in the North Sea. ICES Journal of Marine Science 54:654–683.
Cherel, Y., V. Ridoux, H. Weimerskirch, T. Tveraa, and O. Chastel. 2001. Capelin ( Mallotus villosus ) as an important food source for northern fulmars ( Fulmarus glacialis ) breeding at Bjørnøya (Bear Island), Barents Sea. ICES Journal of Marine Science 58:355–361.
Clegg, T. L., S. Christensen-Dalsgaard, V. S. Bråthen, A. Tarroux, J. Danielsen, S. Descamps, A. Follestad, G. T. Hallgrimsson, M. Helberg, H. H. Helgason, J. E. Jónsson, Y. Kolbeinsson, H. Strøm, P. Thompson, T. L. Thorarinsson, T. Williams, and K. M. Bærum. 2024. Bycatch of northern fulmar (Fulmarus glacialis) in Norwegian longline fisheries: Assessing spatiotemporal variations in scale and risk to improve management. Global Ecology and Conservation 56:e03350.
Collard, F., S. Leconte, J. Danielsen, C. Halsband, D. Herzke, M. Harju, F. Tulatz, G. W. Gabrielsen, and A. Tarroux. 2022. Plastic ingestion and associated additives in Faroe Islands chicks of the Northern Fulmar Fulmarus glacialis. Water Biology and Security 1:100079.
Darby, J. H., M. Clairbaux, J. L. Quinn, P. Thompson, L. Quinn, D. Cabot, H. Strøm, T. L. Thórarinsson, J. Kempf, and M. J. Jessopp. 2023. Decadal increase in vessel interactions by a scavenging pelagic seabird across the North Atlantic. Current Biology 33:4225-4231.e3.
Descamps, S., J. Aars, E. Fuglei, K. M. Kovacs, C. Lydersen, O. Pavlova, Å. Ø. Pedersen, V. Ravolainen, and H. Strøm. 2017. Climate change impacts on wildlife in a High Arctic archipelago – Svalbard, Norway. Global Change Biology 23:490–502.
Descamps, S., and H. Strøm. 2021. As the Arctic becomes boreal: ongoing shifts in a high-Arctic seabird community. Ecology 102:e03485.
Dupuis, B., F. Amélineau, A. Tarroux, O. Bjørnstad, V. Bråthen, J. Danielsen, S. Descamps, P. Fauchald, G. Hallgrimsson, E. Hansen, M. Helberg, H. Helgason, J. Jónsson, Y. Kolbeinsson, E. Lorentzen, P. Thompson, T. Thórarinsson, and H. Strøm. 2021. Light-level geolocators reveal spatial variations in interactions between northern fulmars and fisheries. Marine Ecology Progress Series 676:159–172.
Fauchald, P., T. Anker-Nilssen, R. T. Barrett, and J. O. Bust. 2015. The status and trends of seabirds breeding in Norway and Svalbard – NINA Report 1151. Norwegian Institute for Nature Research.
Fauchald, P., A. Tarroux, F. Amélineau, V. S. Bråthen, S. Descamps, M. Ekker, H. H. Helgason, M. K. Johansen, B. Merkel, B. Moe, J. Åström, T. Anker-Nilssen, O. Bjørnstad, O. Chastel, S. Christensen-Dalsgaard, J. Danielsen, F. Daunt, N. Dehnhard, K. E. Erikstad, A. Ezhov, M. Gavrilo, G. T. Hallgrimsson, E. S. Hansen, M. Harris, M. Helberg, J. E. Jónsson, Y. Kolbeinsson, Y. Krasnov, M. Langset, S. H. Lorentsen, E. Lorentzen, M. Newell, B. Olsen, T. K. Reiertsen, G. H. Systad, P. Thompson, T. L. Thórarinsson, S. Wanless, K. Wojczulanis-Jakubas, and H. Strøm. 2021. Year-round distribution of Northeast Atlantic seabird populations: applications for population management and marine spatial planning. Marine Ecology Progress Series 676:255–276.
Fayet, A. L., T. Anker-Nilssen, A. Breistøl, S. Descamps, S. A. Hanssen, T. K. Reiertsen, J. O. Bustnes, S. Christensen-Dalsgaard, N. Dehnhard, K.-E. Erikstad, A. Follestad, M. Langset, K. Layton-Matthews, S.-H. Lorentsen, E. Lorentzen, B. Moe, H. Strøm, G. H. R. Systad, and A. Tarroux. 2025. Key-site monitoring in Norway 2024, including Svalbard and Jan Mayen. SEAPOP.
van Franeker, J. A., C. Blaize, J. Danielsen, K. Fairclough, J. Gollan, N. Guse, P.-L. Hansen, M. Heubeck, J.-K. Jensen, G. Le Guillou, B. Olsen, K.-O. Olsen, J. Pedersen, E. W. M. Stienen, and D. M. Turner. 2011. Monitoring plastic ingestion by the northern fulmar Fulmarus glacialis in the North Sea. Environmental Pollution 159:2609–2615.
Gaston, A. J., H. G. Gilchrist, and M. L. Mallory. 2005. Variation in ice conditions has strong effects on the breeding of marine birds at Prince Leopold Island, Nunavut. Ecography 28:331–344.
Herzke, D., T. Anker-Nilssen, T. H. Nøst, A. Götsch, S. Christensen-Dalsgaard, M. Langset, K. Fangel, and A. A. Koelmans. 2016. Negligible impact of ingested microplastics on tissue concentrations of persistent organic pollutants in northern fulmars off coastal norway. Environmental Science & Technology 50:1924–1933.
Kvinnesland, A. 2014. Sjøfugler i Karmøy – Hekkesesongen 2014. Annual report, Karmøy Ringmerkingsgruppe.
Lorentsen, S.-H. 2015. Havhest Fulmarus glacialis (Linnaeus, 1761). https://artsdatabanken.no/arter/takson/3912/beskrivelse.
Mallory, M. L., and M. R. Forbes. 2011. Nest shelter predicts nesting success but not nesting phenology or parental behaviors in high arctic Northern Fulmars Fulmarus glacialis. Journal of Ornithology 152:119–126.
Mallory, M. L., S. A. Hatch, and D. N. Nettleship. 2020. Northern Fulmar (Fulmarus glacialis), version 1.0. Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.norful.01.
Phillips, R. A., M. K. Petersen, K. Lilliendahl, J. Solmundsson, K. C. Hamer, C. J. Camphuysen, and B. Zonfrillo. 1999. Diet of the northern fulmar Fulmarus glacialis : reliance on commercial fisheries? Marine Biology 135:159–170.
Ramírez, I., D. Mitchell, A. Vulcano, Y. Rouxel, D. Marchowski, A. Almeida, J. M. Arcos, V. Cortes, G. Lange, J. Morkūnas, N. Oliveira, and V. H. Paiva. 2024. Seabird bycatch in European waters. Animal Conservation 27:737–752.
Shimmings, P., and I. J. Øien. 2015. Bestandsestimater for norske hekkefugler. Norsk Ornitologisk Forening.
Stokke, B., S. Dale, K.-O. Jacobsen, T. Lislevand, R. Solvang, and H. Strøm. 2021a. Fugler: Vurdering av havhest Fulmarus glacialis for Svalbard. Rødlista for arter 2021. Artsdatabanken. https://lister.artsdatabanken.no/rodlisteforarter/2021/31840.
Stokke, B., S. Dale, K.-O. Jacobsen, T. Lislevand, R. Solvang, and H. Strøm. 2021b. Fugler: Vurdering av havhest Fulmarus glacialis for Norge. Rødlista for arter 2021. Artsdatabanken. https://lister.artsdatabanken.no/rodlisteforarter/2021/31892.
Trevail, A. M., G. W. Gabrielsen, S. Kühn, and J. A. Van Franeker. 2015. Elevated levels of ingested plastic in a high Arctic seabird, the northern fulmar (Fulmarus glacialis). Polar Biology 38:975–981.
Verheyden, C., and P. Jouventin. 1994. Olfactory behavior of foraging Procellariiforms. The Auk 111:285–291.
Žydelis, R., C. Small, and G. French. 2013. The incidental catch of seabirds in gillnet fisheries: A global review. Biological Conservation 162:76–88.