Lunde
Engelsk navn:
Atlantic puffin
Vitenskapelig navn:
Fratercula arctica
ForfatterE:
Sist oppdatert:
Beskrivelse
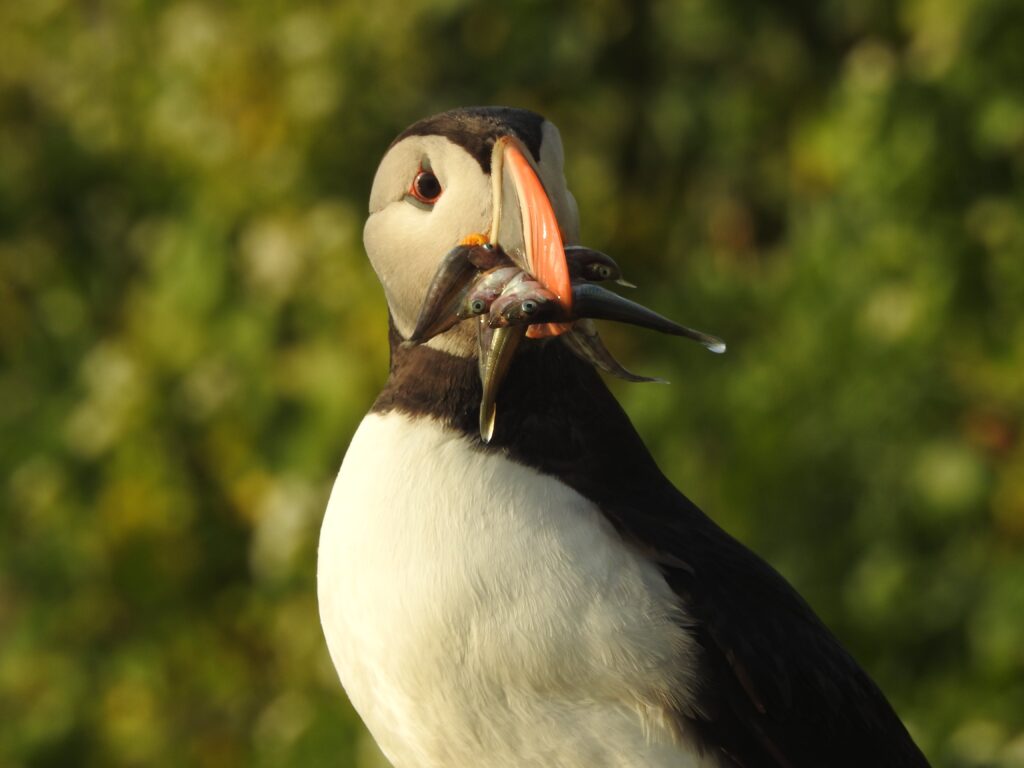
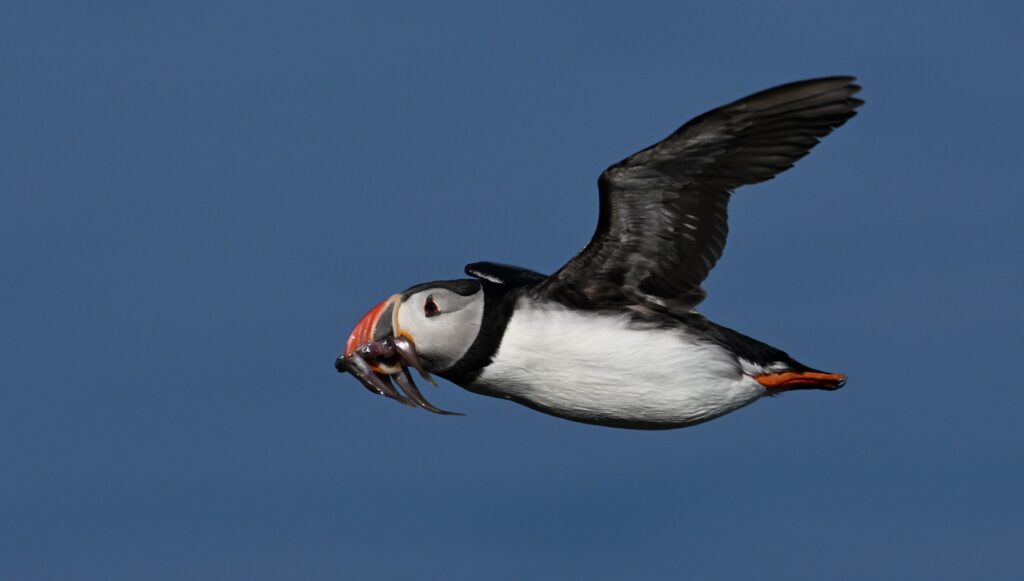
Lunden er en mellomstor alkefugl som måler 18–20 cm og veier mellom 350 og 600 gram, avhengig av alder og opprinnelse. Den har svart overside og hvit underside.
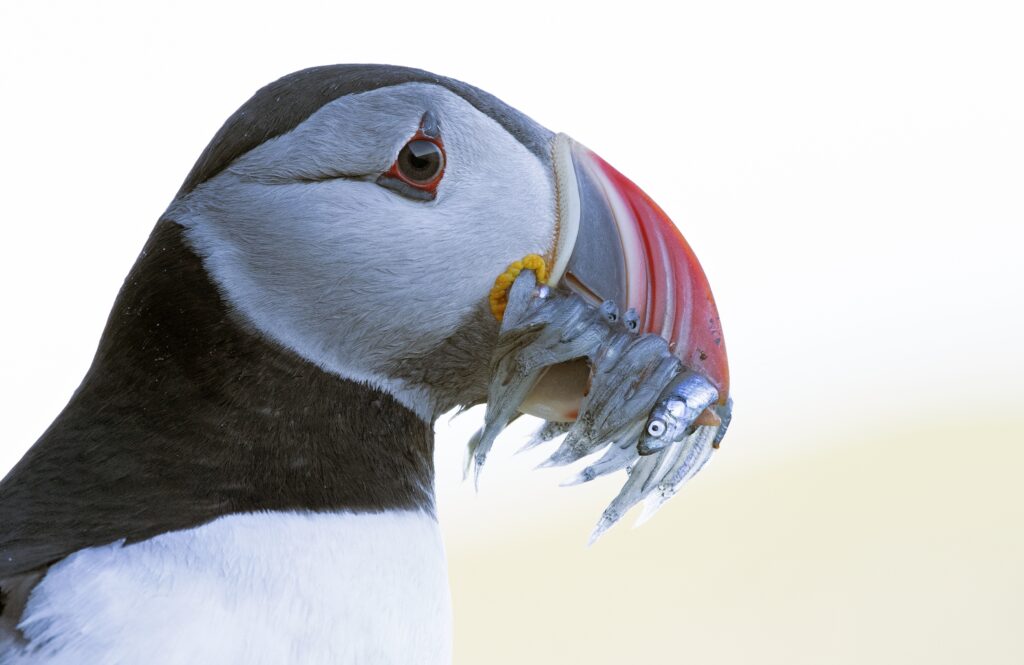
Hodet har hvite eller lysegrå felt rundt øyne og kinn, svart isse og et svart bånd rundt nakken. I hekketiden har lunden oransje bein og et svært karakteristisk trekantet, fargerikt nebb i nyanser av oransje, rødt og blåsvart, med en lys vokshud øverst på nebbet og en tydelig, gul rosett i munnviken. Dette gjør arten lett å skille fra de andre alkefuglene som hekker i Norge. Øynene har en tydelig rød ring rundt iris og en trekant av forhornet grå hud rundt øyet, noe som gir fuglen et «overrasket» uttrykk. De svømmehudkledde føttene har tre skarpe klør til å grave ganger, inkludert en krum indre klo.
Om vinteren feller lunden hornplatene på nebbet og rundt øynene, slik at nebbet blir mindre og mørkere. Samtidig skrumper rosettene inn og blekner, mens ansiktsfjærene blir mørkere. Beina blekner også til en lysere oransje.
Kjønnene er like i utseende, men hunnene er vanligvis noe mindre og lettere enn hannene (Harris & Wanless 2011). Unge fugler har smalere nebb med færre furer enn de voksne (Harris 2014).
Lunden har en kompleks taksonomi som lenge har vært omdiskutert. Hel-genomanalyser tyder på at de tre tradisjonelle underartene F. a. arctica, F. a. grabae og F. a. naumanni bør erstattes med fire genetisk distinkte geografiske grupper: (i) det vestlige Atlanterhavet, (ii) Spitsbergen, (iii) Island, Færøyene og Norge, og (iv) De britiske øyer (Kersten et al. 2021).
Det finnes også bevis for nylig (20. århundre) hybridisering mellom den større F. a. naumanni og den mindre F. a. arctica på Bjørnøya (Kersten et al. 2023), men tilsynelatende ikke i Nordvest-Grønland (Leigh et al. 2023).
Relevante lenker:
Rødlistestatus for lunde
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Den norske hekkebestanden av lunde ble estimert til om lag 830 000 par i 2024. De fleste hekker i store kolonier langs kysten av Nord-Norge, mens koloniene på Svalbard (Spitsbergen og Bjørnøya) og Jan Mayen er små selv om mange av dem trolig er betydelig underestimert (Fauchald et al. 2015).
Hekkebestanden i norsk del av Barentshavet (inkludert Lofoten) er estimert til litt under 800 000 hekkende par. Langs kysten av Norskehavet har vi rundt 50 000 par, men dette er sannsynligvis underestimert. Det hekker færre enn 2 000 par langs den norske Nordsjøkysten.
Den norske lundebestanden utgjør omtrent en femtedel av den europeiske bestanden, som er estimert til 7 400 000–8 240 000 individer (BirdLife International 2021). Omkring 2,8 millioner par hekker på Island (Hansen et al. 2021), og resten hekker hovedsakelig i Storbritannia (475 000 par) og på Færøyene (400 000 par, Harris and Wanless 2011), med mindre kolonier i Irland, Grønland, og Russland.
Den globale bestanden av lunde er estimert til 12 til 14 millioner individer (BirdLife International 2018). Utenfor Europa finnes de viktigste bestandene langs østkysten av Canada (ca. 545 000 par), med noen få små kolonier på St Pierre et Miquelon (Frankrike) og i Maine (USA).
Nasjonalt
| Region/område | Estimert antall (par) | År | Referanse |
|---|---|---|---|
| Svalbard | <4 017 | ||
| Bjørnøya | <1 000 | 2014 | Anker-Nilssen et al. 2015 |
| Øvrige områder | 3 017 | 2024 | SEAPOP 2024 |
| Jan Mayen | <5 000 | 2014 | Anker-Nilssen et al. 2015 |
| Fastlandet | 820 747 | ||
| Barentshavet | 772 326 | 2024 | SEAPOP 2024 |
| Norskehavet | 46 581 | 2024 | SEAPOP 2024 |
| Nordsjøen | 1 840 | 2024 | SEAPOP 2024 |
| Norge totalt | <829 764 |
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 545 000 | Par | Økende | 2022 | Canadian Wildlife Service (2022, upublisert data, sitert i Burnell et al. 2023); Enviroment and Climate Change Canada (2019) (trend) |
| Danmark | 14 806 | Par | Synkende | 2015 – 2021 | Burnell et al. 2023 |
| England | 369 279 | AOB | 2015 – 2021 | Burnell et al. 2023 | |
| Færøyene | 400 000 | Par | Synkende | 2009 | BirdLife International 2015; Harris & Wanless 2011 |
| Grønland | 3 000 | Individer | Synkende | 2018 | Boertmann & Bay 2018 |
| Island | 2 835 000 | Par | Synkende | 2021 | Hansen 2019 (trend); Hansen et al. 2021 |
| Nord-Irland (UK) | 574 | AOB | 2015 – 2021 | Burnell et al. 2023 | |
| Republikken Irland | 14 232 | AOB | 2015 – 2021 | Burnell et al. 2023 | |
| Russland | 5 000 | Par | Stabil | 2000 | Anker-Nilssen et al. 2000; Strøm et al. 2009 |
| Skottland | 369 279 | AOB | 2015 – 2021 | Burnell et al. 2023 | |
| Wales | 30 663 | AOB | 2015 – 2021 | Burnell et al. 2023 | |
| Globalt | 12 000 000–14 000 000 | Individer | Synkende | 2011 | BirdLife International 2018 |
AOB=Apparently Occupied Burrows
Hekkeutbredelse
Lunden er utbredt over store deler av Nord-Atlanteren; i Europa hekker den fra Frankrike og De britiske øyer via Færøyene til Svalbard og nordvestlige deler av Russland, samt på Island og Jan Mayen.
I det vestlige Atlanterhavet hekker den fra Maine til Baffinbukta og langs vestkysten av Grønland.
I Norge er koloniene på Jan Mayen og Svalbard (inkludert Bjørnøya) forholdsvis små, mens hoveddelen av bestanden hekker i langt større kolonier langs den nordlige fastlandskysten, fra Finnmark til Lofoten.
Det finnes også noen mindre kolonier lenger sør i Nordland, i Trøndelag og i Møre og Romsdal, der Runde er den største sørlige kolonien, samt enkelte mindre kolonier videre sørover til Rogaland.
Kart: Hekkeutbredelse i ulike regioner. Boblenes størrelse representerer estimert bestandsstørrelse.
Les mer…
Her oppgis våre siste estimater av hekkebestander for denne arten. Vi har tatt utgangspunkt i siste telling fra hver koloni og brukt bestandsutviklingen i regionen til å beregne dagens hekkebestand.
Trekk- og vinterområder
Lunden er en pelagisk trekkfugl og holder seg vanligvis langt fra kysten utenfor hekketiden. Den forlater som regel hekkeområdet kort tid etter hekkesesongen, og returnerer flere uker før eggleggingen starter. Før den går i land, oppholder den seg gjerne til havs i nærheten av kolonien (Harris & Wanless 2011).
Langs den norske fastlandskysten er lundene som regel tilbake ved koloniene i mars eller april, og forlater dem igjen i august. På Spitsbergen er tilstedeværelsen forskjøvet seks til åtte uker ut i tid.
Trekkveier og overvintringsområder varierer betydelig mellom ulike bestander av lunde (Fayet et al. 2017). Dette gjelder også for norske bestander, som samlet overvintrer over et stort område som omfatter det meste av det nordøstlige Atlanterhavet, Barentshavet, Norskehavet, Grønlandshavet, områdene rundt Island og deler av Nordsjøen.
Trekket følger i stor grad de sesongmessige vindmønstrene, og danner en sirkel mot klokkeretningen der fuglene trekker vest- og sørover langs Grønlandskysten om høsten og returnerer øst- og nordover nærmere De britiske øyer om våren (Amélineau et al. 2024).
Lunder som hekker på Spitsbergen overvintrer i Grønlandshavet og Danmarkstredet, mens fugler fra Hornøya og Hjelmsøya i Finnmark tilbringer mesteparten av vinteren i Barentshavet.
Bestander lenger sør, som Røst og Anda i Nordland, Sklinna i Trøndelag og Runde i Møre og Romsdal, besøker alle Barentshavet om høsten før de trekker vestover til det nordvestlige Atlanterhavet og Danmarkstredet for å overvintre, og returnerer til Norskehavet om våren.
Enkelte individer fra de sørligste koloniene oppholder seg også i Nordsjøen om vinteren.
Arealbruk i ulike årstider basert på sporingsinformasjon fra individer i utvalgte lokaliteter. Velg hvilke årstider du vil se arealbruken for i øvre venstre hjørne.
Les mer…
Kartet viser kjernetetthetsfordelinger (kernel distributions) lagt over alle tilgjengelige datapunkter for valgt årstid. Disse er basert på individuelle sporingsdata fra hekkende fugler på lokaliteter angitt med sirkler (svart sirkel = informasjon tilgjengelig for høst, vinter og vår; hvit sirkel = informasjon tilgjengelig for sommer).
Økende fargeintensitet på polygonene representerer hhv 25 %, 50 % og 75 % sannsynlighetskonturer for disse funksjonene. Med andre ord viser kartene sannsynligheten for at fugler av denne arten befinner seg i området, basert på de tilgjengelige dataene.
For å zoome: Scroll med musa. For å panorere kartet: Hold inne venstre musknapp og dra. For å endre klodens vinkling: Hold inne høyre musknapp og dra.
Kilde for høst-, vinter- og vår-data er SEATRACK. Kilde for sommerdata er SEAPOP.
Bestandsutvikling
Bestanden av lunde i Norge har vært i tilbakegang siden registreringene startet på 1960-tallet. Dette skyldes i hovedsak kraftig tilbakegang for bestandene i Norskehavet (med unntak av Jan Mayen), mens bestandene i Barentshavet har vært mer stabile.
For eksempel har bestanden på Gjesværstappan i Finnmark, som nå er den største lundekolonien i landet, vært relativt stabil siden begynnelsen av 2000-tallet, og har variert rundt 400 000 par. De mindre koloniene på Hornøya og Anda viser en tilsvarende utvikling.
Lenger sør har bestandene hatt en svakere utvikling. Det mest dramatiske eksempelet er Røst i Lofoten, der de 1,4 millioner parene som hekket i øygruppen på slutten av 1970-tallet (Anker-Nilssen & Øyan 1995; Anker-Nilssen & Røstad 1993) er redusert til under 200 000 par i 2024, som følge av vedvarende lav hekkesuksess (Cury et al. 2011; Layton-Matthews 2024).
På Runde i Møre og Romsdal, den største lundekolonien sør for Lofoten, var bestanden stabil på rundt 100 000 par fram til begynnelsen av 2000-tallet, men avtok deretter til om lag 30 000 par i 2020, og har siden variert rundt det nivået.
Estimerte årlige hekkebestander på nøkkellokalitetene. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Estimerte årlige hekkebestander. Superskript ts betyr at estimatet er et totalestimat for hele populasjonen innenfor valgte nøkkellokalitet, og i betyr estimat for størrelsen av en hekkekoloni/lokalitet som er del av en større bestand i valgte nøkkellokalitet. For noen arter og kolonier er tallene basert på en totaltelling, mens andre estimat er basert på telling av prøvefelt (deler av en bestand), hvorav total hekkbestand er beregnet vha. utvikling i prøvefelt og tidligere tall på total hekkebestand.
Demografi
Overlevelse
Voksenoverlevelsen hos lunde i koloniene i Barentshavet og Norskehavet, har vært relativt høy og stabil siden målingene startet rundt 1990, men ser de fleste stedene ut til å ha blitt dårligere i perioden 2022–2024.
Økende havtemperaturer både i nærheten av koloniene og i overvintringsområdene gjenspeiles i lavere hekkesuksess og redusert voksenoverlevelse, særlig i kolonier i Barentshavet (Layton-Matthews et al. 2025).
Harris et al. (2005) fant at voksenoverlevelsen i europeiske kolonier over en 12-årsperiode (1990–2002) var nokså lik (omtrent 93,5 %), men at den varierte ulikt med sjøtemperaturen i hekkeområdene, trolig gjennom ulike effekter på viktige fiskebestander.
Overlevelsen hos voksne fugler fra Røst er knyttet til forekomsten av førsteårs sild Clupea harengus fra den norske vårgytende bestanden i oppvekstområdet i Barentshavet (Gimenez et al. 2012), hvor lundene oppholder seg etter hekkesesongen (Fayet et al. 2017).
Det finnes få studier av overlevelse hos unge lunder, men ett studie av to årsklasser fra Hornøya viste at også overlevelsen det første året etter utflyging var bemerkelsesverdig høy (91–92 %), og ikke mye lavere enn hos voksne fugler (Sandvik et al. 2008).
Gjenfunnsrater av lundeunger merket på Røst indikerer imidlertid at overlevelsen det første året varierer betydelig med ungenes kondisjon ved utflyging (Anker-Nilssen & Aarvak 2006).
Årlige overlevelsesrater med tilhørende konfidensintervall. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Overlevelsesrate og konfidensintervall er oppgitt for hvert år. Overlevelserate er basert på «fangst-gjenfangst»-data som blir innhentet på utvalgte nøkkellokaliteter hvert år: Et utvalg individuelle fugler blir merket med hver sin ring med unik kode, og basert på observasjoner av disse individene fra år til år kan en beregne gjennomsnittlig årlig overlevelse over samme tidsperiode.
Reproduksjon
Lunden er en kolonihekkende art som vanligvis foretrekker øyer med gresskledde skråninger eller steinurer og få predatorer. På Spitsbergen hekker den også i sprekker i bratte fuglefjell (Strøm 2006).
Lunden er en langlivet og monogam art, med en gjennomsnittlig levealder på 25 år (høyeste registrerte levealder: 45 år; Fransson et al. 2023). Fuglene begynner vanligvis å hekke når de er seks til sju år gamle.
I motsetning til andre alkefugler i Atlanterhavet parer de seg hovedsakelig på sjøen, og farskap utenom paret er sjeldent eller ikke-eksisterende (Anker-Nilssen et al. 2008). Lunden legger ett egg i en underjordisk gang, og begge foreldrene ruger vekselvis i gjennomsnitt 41 dager (Harris & Wanless 2011).
I Norge skjer eggleggingen vanligvis i slutten av april i de sørligste fastlandskoloniene og i midten av mai i de nordligste, mens den på Spitsbergen finner sted i slutten av juni. Det er imidlertid betydelig variasjon mellom år (Burr et al. 2016), som også henger sammen med luft- og sjøtemperatur (Barrett, 2001).
Etter klekking oppholder ungen seg i reiret i omtrent 40 dager, hvor den mates av begge foreldrene flere ganger daglig (Harris & Wanless 2011). I år med dårlig næringstilgang kan reirtiden vare i mer enn 60 dager (Anker-Nilssen 1987; Anker-Nilssen & Aarvak 2006).
Hekkesuksessen varierer betydelig mellom kolonier, og selv innen én lokalitet kan variasjonen mellom år være stor. I Barentshavet var gjennomsnittlig hekkesuksess på Hornøya i perioden 2006–2024 omtrent halvparten av nivået i perioden 1998–2005, med stor variasjon mellom år. Dette skyldtes blant annet predasjon på unger fra amerikansk mink Neogale vison, som var betydelig i enkelte år fram til 2015, da arten ble utryddet fra øya (Barrett et al., 2015).
Hekkesuksessen i andre kolonier i Barentshavet siden begynnelsen av 2000-tallet viser også stor variasjon mellom år, men er generelt høyere på Anda (Vesterålen) enn på Hjelmsøya (vestlige Finnmark), trolig også som følge av tilstedeværelse av mink på Hjelmsøya fram til tidlig på 2020-tallet (Stien et al. 2023).
I Norskehavet har hekkesuksessen gjennomgående vært svært lav på Røst siden slutten av 1960-tallet, inkludert ni sammenhengende år med total hekkesvikt i perioden 2007–2015, drevet av lav næringstilgang i nærheten av kolonien (Durant et al., 2003; Fayet et al., 2021).
En uventet effekt av denne vedvarende lave hekkesuksessen er redusert senesensrate (den aldersrelaterte nedgangen i overlevelse, Landsem et al. 2023). Lenger sør er hekkesuksessen høyere på Runde.
Beregnet årlig reproduksjon på nøkkellokalitetene. Enhet avhenger av art og lokalitet. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Hekkesuksess er definert på flere ulike måter avhengig av utvalgte arters livshistorie og overvåkingsmetodikk for de ulike nøkkellokalitetene. Alkefuglene (bortsett fra teist), i tillegg til havhest og havsule, legger kun ett egg pr par, mens de resterende har en kullstørrelse fra to og oppover. For de kolonihekkende artene, f.eks. lunde og havsule, er hekkesuksess målt på et utvalg av populasjonen, og de årlige estimatene har derfor et konfidensintervall som beskriver usikkerheten på estimatet. For noen arter/områder er hekkesuksess målt på samtlige individ i populasjonen, og det er derfor ikke noe usikkerhet knyttet til de årlige verdiene av hekkesuksess.
Næringsvalg
Lunden er en vingedrevet dykker som vanligvis utfører relativt grunne dykk (< 15 m), men betydelig dypere dykk er også registrert (Dunn et al. 2019; Shoji et al. 2015).
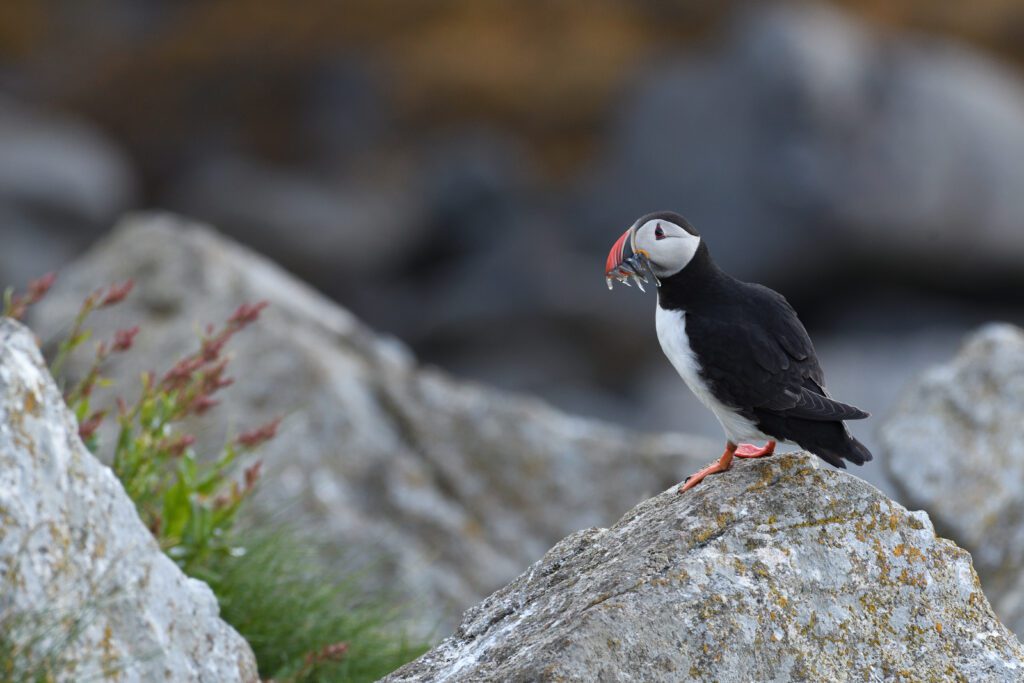
Lunden er en pelagisk næringssøkende art, og er avhengig av små pelagiske stimfisk for å fø opp ungen. Dietten til voksne fugler er mindre kjent, særlig utenfor hekkesesongen, men er trolig lik eller mer variert enn ungenes diett, og inkluderer ikke bare fisk, men også krepsdyr (Bowser et al. 2013; Fayet et al. 2021; Harris & Wanless 2011).
Hovedbyttet i lundens ungeføde varierer geografisk. Langs fastlandskysten var lunden tidligere i stor grad avhengig av lodde Mallotus villosus og sil (tobis) Ammodytes sp. i Finnmark, sild og sei Pollachius virens i Troms og nordlige deler av Nordland, mens tobis og hyse Melanogrammus aeglefinus dominerte på Runde i Møre og Romsdal, og brisling Sprattus sprattus og hyse i Rogaland (Barrett et al. 1987).
I enkelte år kan også andre torskefisker, som torsk Gadus morhua, hyse og hvitting Merlangius merlangus, utgjøre en betydelig del av dietten i noen kolonier. Andelen torskefisk i dietten har økt over tid på Hornøya (Barrett 2002; 2015), mens hyse har erstattet sei på Røst (Anker-Nilssen & Aarvak 2006).
Utenfor Norge er sil hovedbyttet for lunde på de britiske øyer og sørlige deler av Island, lodde nordvest på Island og i Newfoundland, og sild, hyse, flere arter av lysing og sil i Mainebukta (Harris & Wanless 2011; Kennerley et al. 2024).
Påvirkningsfaktorer og trusler
Lunden er sårbar for en rekke trusler, særlig næringssvikt i nærheten av hekkekoloniene, samt predasjon i koloniene og ekstreme værhendelser.
Lunden påvirkes av næringssvikt som følge av klimaendringer og konkurranse med fiskerier. For eksempel hadde kollapsen i bestanden av norsk vårgytende sild på 1960-tallet, som følge av overfiske, alvorlige konsekvenser for hekkesuksess og bestandsutvikling langs kysten av Norskehavet, frem til sildebestanden tok seg opp igjen på slutten av 1980-tallet (Durant et al. 2003).
Nedleggelsen av et tobisfisket i Nordsjøen førte imidlertid ikke til økt hekkesuksess i nærliggende lundekolonier, til tross for en negativ sammenheng mellom fiskeriinnsats og andelen tobis i ungenes diett (Searle et al. 2023). Aldersselektive fiskerier kan også føre til brå endringer i gyteområdene til stimfisk, som følge av tap av kollektiv migrasjonskunnskap, slik det ble observert for norsk vårgytende sild i perioden 2021–2024 (Slotte et al. 2025). Denne plutselige forskyvningen av gyteområdene fra Møre til Vesterålen vil sannsynligvis ha betydelige konsekvenser for hekkesuksess og bestandsutvikling hos lunde, samt for mange andre sjøfuglarter som hekker langs kysten av Norskehavet og sørlige deler av Barentshavet.
Parallelt kan storskala endringer i havtemperatur og havstrømmer som følge av klimaendringer påvirke vekst, overlevelse og drivmønstre hos viktige byttedyr for lunde (Sandvik et al. 2016), noe som også kan føre til næringssvikt, lav reproduksjon og til slutt bestandsnedgang (Fayet et al. 2021).
Innførte predatorer som rotter Rattus norvegicus og mink kan ha svært store konsekvenser for lundebestander, og har ført til at en rekke kolonier har forsvunnet innen artens utbredelsesområde (Harris & Wanless 2011). I Norge har predasjon fra mink påvirket hekkesuksessen hos lunde i flere kolonier, blant annet på Hjelmsøya og Hornøya (der minken ble utryddet i 2015) i Finnmark (Stien et al. 2023).
Flygende predatorer som havørn Haliaeetus albicilla, vandrefalk Falco peregrinus, svartbak Larus marinus og ravn Corvus corax tar både voksne og flygedyktige unger, mens mindre måker og joer hovedsakelig utøver kleptoparasittisme. Effekten av slike predatorer på demografiske forhold hos lunde er lite studert i norske kolonier, men en studie fra Skottland viste relativt liten effekt av predasjon og kleptoparasittisme fra svartbak (Langlois Lopez et al. 2023).
På russisk side av Varangerfjorden tydet imidlertid bestandsutviklingen før og etter aktiv reduksjon av måkebestanden på en betydelig effekt på lundebestanden (Anker-Nilssen, and Tatarinkova 2000).
Lunden kan rammes av massedødelighet, som oftest oppstår om vinteren. Kraftige stormer i lundens overvintringsområder, som forventes å bli både hyppigere og mer intense som følge av klimaendringer, kan redusere næringstilgangen ved å forverre næringssøk og presse byttedyr ned på større dyp (Clairbaux et al. 2021). Over lengre perioder kan slike forhold føre til sult, og etter særlig ekstreme hendelser kan hundrevis til tusenvis av døde fugler drive i land (Harris et al. 2023; Morley et al. 2017).
Den samlede effekten av slike episoder på bestandsdynamikken er foreløpig ikke fullt ut kvantifisert, men store massedødelighetshendelser kan føre til betydelige reduksjoner i voksenoverlevelse gjennom vinteren (Anker-Nilssen et al., 2017; Laurenson et al., 2025).
I motsetning til mange andre alkefugler ser ikke lunden ut til å være spesielt utsatt for bifangst i fiskerier, i alle fall ikke basert på registrert dødelighet (Ramírez et al. 2024).
Referanser
Amélineau, F., Tarroux, A., Lacombe, S., Bråthen, V. S., Descamps, S., Ekker, M., Fauchald, P., Johansen, M. K., Moe, B., Anker-Nilssen, T., Bogdanova, M. I., Bringsvor, I. S., Chastel, O., Christensen-Dalsgaard, S., Daunt, F., Dehnhard, N., Einar Erikstad, K., Ezhov, A., Gavrilo, M., Hansen, E. S., Harris, M. P., Helgason, H. H., Langset, M., Léandri-Breton, D.-J., Lorentsen, S.-H., Merkel, B., Newell, M., Olsen, B., Reiertsen, T. K., Systad, G. H. R., Thorarinsson, T. L., Åström, J., & Strøm, H. 2024. Multi-colony tracking of two pelagic seabirds with contrasting flight capability illustrates how windscapes shape migratory movements at an ocean-basin scale. Ecography : e06496.
Anker-Nilssen, T. 1987. The breeding performance of Puffins Fratercula arctica on Røst, northern Norway in 1979-1985. Fauna norvegica Series C, Cinclus 10 : 21–38.
Anker-Nilssen, T. 1992. Food supply as a determinant of reproduction and population development in Norwegian Puffins Fratercula arctica. Universitetet i Trondheim.
Anker-Nilssen, T. & Aarvak, T. 2006. Long-term studies of seabirds in the municipality of Røst, Nordland. Results with focus on 2004 and 2005. Norwegian Institute for Nature Research, NINA Report 133.
Anker-Nilssen, T. & Aarvak, T. 2009. Satellite telemetry reveals post-breeding movements of Atlantic puffins Fratercula arctica from Rost, North Norway. Polar Biology 32(11) : 1657–1664.
Anker-Nilssen, T., Aarvak, T., & Bangjord, G. 2003. Mass mortality of Atlantic Puffins Fratercula arctica off Central Norway, spring 2002: causes and consequences. Atlantic Seabirds 5(2) : 57–71.
Anker-Nilssen, T., Harris, M., Kleven, O., & Langset, M. 2017. Status, origin, and population level impacts of Atlantic Puffins killed in a mass mortality event in southwest Norway early 2016. Seabird Journal 30 : 1–14.
Anker-Nilssen, T., Kleven, O., Aarvak, T., & Lifjeld, J. 2008. No evidence of extra-pair paternity in the Atlantic Puffin Fratercula arctica. Ibis 150(3) : 619–622.
Anker-Nilssen, T. & Øyan, H. S. 1995. Long-term studies of the breeding biology of puffins at Røst. Norwegian Institute for Nature Research, NINA Fagrapport 15.
Anker-Nilssen, T. & Røstad, O. W. 1993. Census and Monitoring of Puffins Fratercula arctica on Røst, N Norway, 1979-1988. Ornis Scandinavica (Scandinavian Journal of Ornithology) 24(1) : 1–9.
Anker-Nilssen, T. & Tatarinkova, I. P. 2000. Atlantic puffin Fratercula arctica. in Anker-Nilssen, T., Bakken, V., Strøm, H., Golovkin, A.N., Bianki, V.V., Tatarinkova, I.P. (red.). The status of marine birds breeding in the Barents Sea region. Norsk Polarinstitutt Rapportserie: 137–143.
Barrett, R. 2001. The breeding demography and egg size of North Norwegian Atlantic Puffins Fratercula arcitca and Razorbills Alca torda during 20 years of climate variability. Atlantic Seabirds 3(3) : 97–112.
Barrett, R. 2002. Atlantic puffin Fratercula arctica and common guillemot Uria aalge chick diet and growth as indicators of fish stocks in the Barents Sea. Marine Ecology Progress Series 230 : 275–287.
Barrett, R. 2015. Atlantic Puffin Fratercula arctica chick growth in relation to food load composition. Seabird Journal 28 : 17–29.
Barrett, R., Anker-Nilssen, T., Bustnes, J. O., Christensen-Dalsgaard, S., Descamps, S., Erikstad, K.-E., Hanssen, S. A., Lorentsen, S.-H., Lorentzen, E., Reiertsen, T. K., Strøm, H., & Systad, G. H. 2015. Key-site monitoring in Norway 2014, including Svalbard and Jan Mayen. SEAPOP Short Report 1–2015 : 14 pp.
Barrett, R. T., Anker-Nilssen, T., Rikardsen, F., Valde, K., Røv, N., & Vader, W. 1987. The Food, Growth and Fledging Success of Norwegian Puffin Chicks Fratercula arctica in 1980-1983. Ornis Scandinavica (Scandinavian Journal of Ornithology) 18(2) : 73–83.
BirdLife International. 2018. Fratercula arctica. The IUCN Red List of Threatened Species.
BirdLife International. 2021. Fratercula arctica (Europe assessment). The IUCN Red List of Threatened Species.
Bowser, A. K., Diamond, A. W., & Addison, J. A. 2013. From Puffins to Plankton: A DNA-Based Analysis of a Seabird Food Chain in the Northern Gulf of Maine. PLOS ONE 8(12) : e83152.
Brun, E. 1979. Present status and trends in population of seabirds in Norway. in Bartonek, J. C. & Nettelship, D. N. (red.). Conservation of Marine Birds of Northern North America. U.S. Department of the Interior, Fish and Wildlife Service, Wildlife Research Report: 289–301.
Burnell, D., Perkins, A. J., Newton, S. F., Bolton, M., Tierney, T. D., & Dunn, T. E. 2023. Seabirds Count: a census of breeding seabirds in Britain and Ireland (2015-2021). Lynx Nature Books, Barcelona, Spain.
Burr, Z. M., Varpe, Ø., Anker-Nilssen, T., Erikstad, K. E., Descamps, S., Barrett, R. T., Bech, C., Christensen-Dalsgaard, S., Lorentsen, S.-H., Moe, B., Reiertsen, T. K., & Strøm, H. 2016. Later at higher latitudes: large-scale variability in seabird breeding timing and synchronicity. Ecosphere 7(5) : e01283.
Clairbaux, M., Mathewson, P., Porter, W., Fort, J., Strøm, H., Moe, B., Fauchald, P., Descamps, S., Helgason, H. H., Bråthen, V. S., Merkel, B., Anker-Nilssen, T., Bringsvor, I. S., Chastel, O., Christensen-Dalsgaard, S., Danielsen, J., Daunt, F., Dehnhard, N., Erikstad, K. E., Ezhov, A., Gavrilo, M., Krasnov, Y., Langset, M., Lorentsen, S.-H., Newell, M., Olsen, B., Reiertsen, T. K., Systad, G. H., Thórarinsson, T. L., Baran, M., Diamond, T., Fayet, A. L., Fitzsimmons, M. G., Frederiksen, M., Gilchrist, H. G., Guilford, T., Huffeldt, N. P., Jessopp, M., Johansen, K. L., Kouwenberg, A.-L., Linnebjerg, J. F., Major, H. L., Tranquilla, L. M., Mallory, M., Merkel, F. R., Montevecchi, W., Mosbech, A., Petersen, A., & Grémillet, D. 2021. North Atlantic winter cyclones starve seabirds. Current Biology 31(17) : 3964- 3971.e3.
Cury, P. M., Boyd, I. L., Bonhommeau, S., Anker-Nilssen, T., Crawford, R. J. M., Furness, R. W., Mills, J. A., Murphy, E. J., Österblom, H., Paleczny, M., Piatt, J. F., Roux, J.-P., Shannon, L., & Sydeman, W. J. 2011. Global Seabird Response to Forage Fish Depletion—One-Third for the Birds. Science 334(6063) : 1703–1706.
Dunn, R. E., Wanless, S., Green, J. A., Harris, M. P., & Daunt, F. 2019. Effects of body size, sex, parental care and moult strategies on auk diving behaviour outside the breeding season. Journal of Avian Biology 50(7).
Durant, J. M., Anker-Nilssen, T., & Stenseth, N. Chr. 2003. Trophic Interactions under Climate Fluctuations: The Atlantic Puffin as an Example. Proceedings: Biological Sciences 270(1523) : 1461–1466.
Fauchald, P., Anker-Nilssen, T., Barrett, R. T., Bustnes, J. O., Bårdsen, B. J., Christensen-Dalsgaard, S., Descamps, S., Engen, S., Erikstad, K. E., Hanssen, S. A., Lorentsen, S. H., Børge, M., Reiertsen, T. K., Strøm, H., & Systad, G., H. 2015. The status and trends of seabirds breeding in Norway and Svalbard. Norwegian Institute for Nature Research, NINA Report 1151.
Fayet, A. L., Clucas, G. V., Anker‐Nilssen, T., Syposz, M., & Hansen, E. S. 2021. Local prey shortages drive foraging costs and breeding success in a declining seabird, the Atlantic puffin. Journal of Animal Ecology 90(5) : 1152–1164.
Fayet, A. L., Freeman, R., Anker-Nilssen, T., Diamond, A., Erikstad, K. E., Fifield, D., Fitzsimmons, M. G., Hansen, E. S., Harris, M. P., Jessopp, M., Kouwenberg, A.-L., Kress, S., Mowat, S., Perrins, C. M., Petersen, A., Petersen, I. K., Reiertsen, T. K., Robertson, G. J., Shannon, P., Sigurðsson, I. A., Shoji, A., Wanless, S., & Guilford, T. 2017. Ocean-wide Drivers of Migration Strategies and Their Influence on Population Breeding Performance in a Declining Seabird. Current Biology 27(24) : 3871- 3878.e3.
Fransson, T., Kolehmainen, T., Moss, D., & Robinson, R. 2023. EURING list of longevity records for European birds.
Gimenez, O., Anker-Nilssen, T., & Grosbois, V. 2012. Exploring causal pathways in demographic parameter variation: path analysis of mark–recapture data. Methods in Ecology and Evolution 3(2) : 427–432.
Hansen, E. S., Garðarsson, A., & Lilliendahl, K. 2021. The Atlantic Puffin´s burrow population in Iceland. [Online poster].
Harris, M. P. 2014. Aging Atlantic Puffins Fratercula arctica in summer and winter. Seabird 27 : 21–40.
Harris, M. P., Bråthen, V. S., Elkins, N., Newell, M., & Wanless, S. 2023. A wreck of Puffins in the North Sea in late 2021. British Birds 116 : 157–167.
Harris, M. P., Nilssen, T. A., McCleery, R. H., Erikstad, K. E., & Shaw, D. N. 2005. Effect of wintering area and climate on the survival of adult Atlantic puffins Fratercula arctica in the eastern Atlantic. Marine Ecology Progress series 297 : 283–296.
Harris, M. P. & Wanless, S. 2011. The Puffin. T. & A.D. Poyser, London.
Kennerley, W. L., Clucas, G. V., & Lyons, D. E. 2024. Multiple methods of diet assessment reveal differences in Atlantic puffin diet between ages, breeding stages, and years. Frontiers in Marine Science 11.
Kersten, O., Star, B., Krabberød, A. K., Atmore, L. M., Tørresen, O. K., Anker-Nilssen, T., Descamps, S., Strøm, H., Johansson, U. S., Sweet, P. R., Jakobsen, K. S., & Boessenkool, S. 2023. Hybridization of Atlantic puffins in the Arctic coincides with 20th-century climate change. Science Advances 9(40) : eadh1407.
Kersten, O., Star, B., Leigh, D. M., Anker-Nilssen, T., Strøm, H., Danielsen, J., Descamps, S., Erikstad, K. E., Fitzsimmons, M. G., Fort, J., Hansen, E. S., Harris, M. P., Irestedt, M., Kleven, O., Mallory, M. L., Jakobsen, K. S., & Boessenkool, S. 2021. Complex population structure of the Atlantic puffin revealed by whole genome analyses. Communications Biology 4(1) : 922.
Landsem, T. L., Yoccoz, N. G., Layton-Matthews, K., Hilde, C. H., Harris, M. P., Wanless, S., Daunt, F., Reiertsen, T. K., Erikstad, K. E., & Anker-Nilssen, T. 2023. Raising offspring increases ageing: Differences in senescence among three populations of a long-lived seabird, the Atlantic puffin. Journal of Animal Ecology 92 : 774–785.
Langlois Lopez, S., Daunt, F., Wilson, J., O’Hanlon, N. J., Searle, K. R., Bennett, S., Newell, M. A., Harris, M. P., & Masden, E. 2023. Quantifying the impacts of predation by Great Black-backed Gulls Larus marinus on an Atlantic Puffin Fratercula arctica population: Implications for conservation management and impact assessments. Marine Environmental Research 188 : 105994.
Laurenson, K., Wood, M. J., Birkhead, T. R., Priestley, M. D. K., Sherley, R. B., Fayet, A. L., Guilford, T., Hatchwell, B. J., & Votier, S. C. 2025. Long-term multi-species demographic studies reveal divergent negative impacts of winter storms on seabird survival. Journal of Animal Ecology 94(1) : 139–153.
Layton-Matthews, K. 2024. Demographic causes of seabird population changes in Norway – Results from a large-scale analysis of demographic time series data. Norwegian Institute for Nature Research, NINA Report 2486.
Layton-Matthews, K., Regan, C. E., Ballesteros, M., Hodges, K., Descamps, S., Anker-Nilssen, T., Benjaminsen, S., Daunt, F., Barrett, R. T., Buckingham, L., Bråthen, V. S., Christensen-Dalsgaard, S., Dehnhard, N., Erikstad, K. E., Fayet, A. L., Helgason, H. H., Johansen, M. K., Lorentsen, S.-H., Lorentzen, E., Moe, B., Systad, G. H., Strøm, H., Searle, K. R., & Reiertsen, T. K. 2025. Demographic responses of North Atlantic seabirds to seasonal ocean warming. Proceedings of the National Academy of Sciences 122(50) : e2507531122.
Leigh, D. M., Kersten, O., Star, B., Anker-Nilssen, T., Burnham, K., Johnson, J., Provencher, J., & Boessenkool, S. 2023. Sympatry of genetically distinct Atlantic Puffins (Fratercula arctica) in the High Arctic. Ibis 165(3) : 1022–1030.
Lid, G. 1981. Reproduction of the Puffin on Røst in the Lofoten Islands in 1964-1980. Fauna norvegica Series C, Cinclus 4 : 30–39.
Morley, T. I., Fayet, A. L., Jessop, H., Veron, P., Veron, M., Clark, J. A., & Wood, M. J. 2017. The seabird wreck in the Bay of Biscay and South-Western Approaches in 2014: A review of reported mortality. Seabird 29 : 22–38.
Ramírez, I., Mitchell, D., Vulcano, A., Rouxel, Y., Marchowski, D., Almeida, A., Arcos, J. M., Cortes, V., Lange, G., Morkūnas, J., Oliveira, N., & Paiva, V. H. 2024. Seabird bycatch in European waters. Animal Conservation 27(6) : 737–752.
Røv, N., Thomassen, J., Anker-Nilssen, T., Barrett, R., & Folkestad, A. O. 1984. Sjøfuglprosjektet 1979-1984. Viltrapport nr 35.
Sandvik, H., Barrett, R. T., Erikstad, K. E., Myksvoll, M. S., Vikebø, F., Yoccoz, N. G., Anker-Nilssen, T., Lorentsen, S.-H., Reiertsen, T. K., Skarðhamar, J., Skern-Mauritzen, M., & Systad, G. H. 2016. Modelled drift patterns of fish larvae link coastal morphology to seabird colony distribution. Nature Communications 7 : 11599.
Sandvik, H., Erikstad, K. E., Fauchald, P., & Tveraa, T. 2008. High Survival of Immatures in a Long-Lived Seabird: Insights from a Long-Term Study of the Atlantic Puffin (Fratercula arctica). The Auk 125(3) : 723–730.
Searle, K. R., Regan, C. E., Perrow, M. R., Butler, A., Rindorf, A., Harris, M. P., Newell, M. A., Wanless, S., & Daunt, F. 2023. Effects of a fishery closure and prey abundance on seabird diet and breeding success: Implications for strategic fisheries management and seabird conservation. Biological Conservation 281 : 109990.
Shoji, A., Elliott, K. H., Fayet, A. L., Boyle, D., Perrins, C., & Guilford, T. 2015. Foraging behaviour of sympatric razorbills and puffins. Marine Ecology Progress Series 520 : 257–267.
Slotte, A., Salthaug, A., Vatnehol, S., Johnsen, E., Mousing, E. A., Høines, Å., Broms, C. T., Bjarnason, S., Homrum, E. í, Skagseth, Ø., & Stenevik, E. K. 2025. Herring spawned poleward following fishery-induced collective memory loss. Nature 642(8069) : 965–972.
Stien, J., Molværsmyr, S., Breistol, A., Guidos, S., Landa, A., & Systad, G. H. 2023. Effektmåling av minkuttak på bakkehekkende sjøfugl. Norwegian Institute for Nature Research, NINA Rapport 2292.
Stokke, B. G., Dale, S., Jacobsen, K. O., Lislevand, T., Solvang, R., & Strøm, H. 2021. Fugler: Vurdering av lunde Fratercula arctica for Norge. Rødlista for arter 2021. Artsdatabanken.
Strøm, H. 2006. Lunde Fratercula arctica. in Kovacs, K. M. & Lydersen, C. (red.). Svalbards fugler og pattedyr. Norsk Polarinstitutt, Polarhåndbok: 174–177.