Makrellterne
Engelsk navn:
Common tern
Vitenskapelig navn:
Sterna hirundo
Forfatter:
Fornavn Etternavn og Fornavn Etternavn
Sist oppdatert:
Beskrivelse
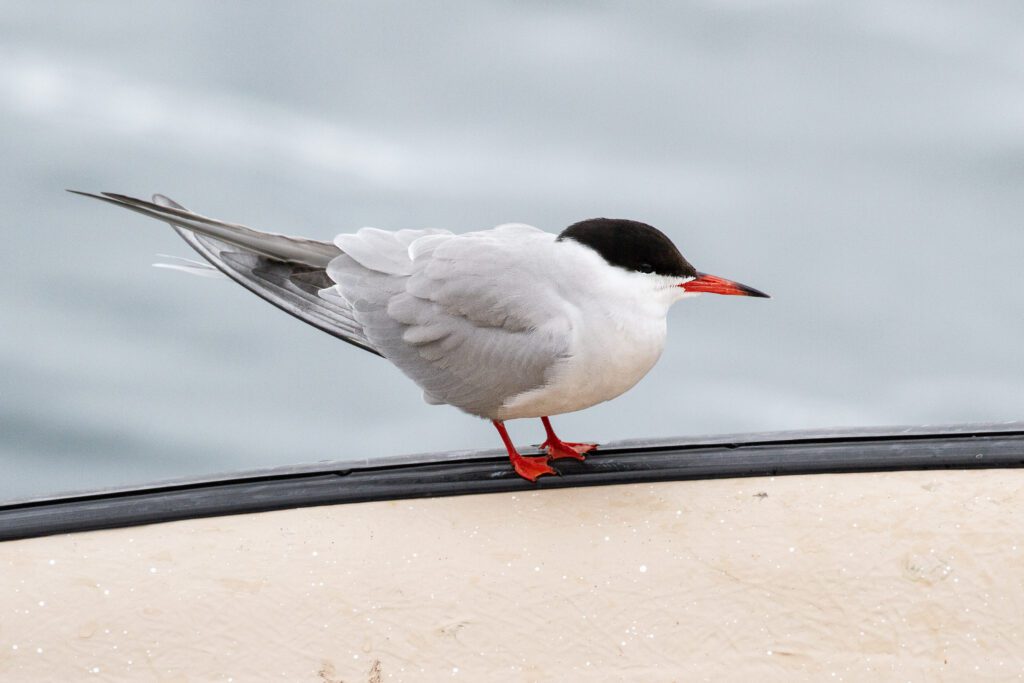
Makrellterna er en liten, elegant flygende slektning av de betraktelig større måkene. Den har hvit kropp, grå rygg og vingeoverside og en slank svart hette. Beina er oransjerøde og nebbet likeså.
Det som tydeligst skiller den fra den veldig like rødnebbterna er den svarte nebbspissen.
Kjønnene er like, og hannen er kun marginalt større enn hunnen (González-Solís et al. 2005).
Relevante lenker:
Rødlistestatus for makrellterne
Makrellterna ble i 2021 vurdert som sterkt truet (EN) i Norge (Stokke et al. 2021). Den var frem til 2015 vurdert som sårbar (VU).
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
I indre Oslofjord var antall hekkende par under 150 i 2025 (Bergan et al. 2025), og i 2022 hekket kun 230 par i hele det gamle fylket Vest-Agder (Olsen 2025).
Den europeiske bestanden teller 162 000 par (Birdlife International 2021).
Generelt er det vanskelig å estimere eksakt bestandstall for makrellterne siden arten kan bytte hekkeplass mellom år, spesielt når egg og unger blir røvet (Banks et al. 2008, Fauchald et al. 2015, Nordström et al. 2003). Andre steder kan den være svært stedtro (Dittmann et al. 2005).
Nasjonalt
| Region/område | Estimert antall (par) | År | Referanse |
|---|---|---|---|
| Fastlandet | 21 354 | 2024 | SEAPOP 2024 |
| Barentshavet | 4 683 | 2024 | SEAPOP 2024 |
| Norskehavet | 13 081 | 2024 | SEAPOP 2024 |
| Nordsjøen | 3 590 | 2024 | SEAPOP 2024 |
| Norge totalt | 21 354 |
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 170 000 | Individ | Synkende (langsiktig) | 1970 – 2022 | Environment and Climate Change Canada and Birds Canada 2024 |
| Danmark | 635 | Par | Stabil (kortsiktig. 2004-2015), Variabelt (langsiktig, 1980-2015) | 2013 – 2018 | European Commission 2020 |
| England | 5 478 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Finland | 29 215–55 624 | Par | Synkende (kortsiktig, 2007-2018), Stabil (langsiktig, 1980-2018) | 2013 – 2018 | European Commission 2020 |
| Nord-Irland (UK) | 1 820 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Republikken Irland | 4 728 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Skottland | 4 071 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Sverige | 18 000–33 000 | Par | Stabil (kortsiktig, 2007-2018), Økende (langsiktig, 1980-2018) | 2013 – 2018 | European Commission 2020 |
| Wales | 850 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Globalt | 1 600 000–3 600 000 | Individ | Wetlands International (2015) |
AON=Apparently Occupied Nests
Hekkeutbredelse
Makrellterna har en cirkumpolar utbredelse og hekker i så vel Europa og Asia som Nord-Amerika.
Mesteparten av den norske bestanden hekker i Sør-Norge, men forekommer som hekkefugl også nord i landet (Stokke et al. 2021).
Den hekker solitært eller i kolonier, gjerne med andre terner eller små måker, på små øyer og skjær både langs kysten og i ferskvann (Becker & Ludwigs 2004, Szostek et al. 2014).
Enkelte steder i Norge kan den også hekke urbant, som på Finnsnes i Senja kommune der den hekker sammen med rødnebbternene i byen, noe som kan lede til konflikter med folk siden koloniforsvaret er så aggressivt.
Kart: Makrellternas hekkeutbredelse i Norge.
Les mer…
Her oppgis våre siste estimater av hekkebestander for denne arten. Vi bruker statistiske utbredelsesmodeller i kombinasjon med tellinger til å beregne hvor fuglene hekker og hvor store hekkebestandene er.
Trekk- og vinterområder
Makrellterna er en trekkfugl som overvintrer langt sør for hekkeutbredelsesområdet. Den norske og vesteuropeiske bestanden av makrellterne, inklusive Østersjøbestandene, overvintrer langs kysten av Sentral- til Sør-Afrika (Bakken et al. 2003, Kiat et al. 2026).
Vest-europeiske bestander har et utpreget såkalt «leapfrog» trekkmønster der nordlige bestander trekker lenger enn sørlige bestander. Nordlige bestander passerer dermed hele utbredelsesområdet og trekksystemene til sørlige bestander på sin vei til og fra sine overvintringsområder (Kiat et al. 2026).
For eksempel trekker de norske bestandene forbi de britiske overvintringsområdene i Vest-Afrika (Franks et al. 2022). Nordamerikanske bestander overvintrer fra Stillehavskysten i sentral-Amerika (Houston 2000), Karibia og langs både øst- og vestkysten av Sør-Amerika (Cuthbert & Wires 2002, Houston 2000), helt ned til Falklandsøyene.
Østeuropeiske bestander overvintrer langs den arabiske halvøya, langs kysten av Sørøst-Asia og Australia og New Zealand (BirdLife International 2018, Kiat et al. 2026).
Bestandsutvikling
Makrellterne har gått kraftig tilbake mange steder i Sør-Norge, blant annet i Oslofjorden der bestanden stadig har minket siden 1979 (Bergan et al. 2025). Også på Sørlandet har arten minket kraftig; i Agder hekker den ikke lenger vest for Lindesnes (Olsen 2025).
Mens den har vært minkende i Norge, regnes makrellterne for å ha en økende bestand i Sverige (Green et al. 2024, Ottosson et al. 2025). I Danmark er arten stabil i punkttellingene (Vikstrøm et al. 2023), men er ellers antatt økende (Dansk ornitologisk forening 2026). Den finske bestanden er økende (Hyvärinen et al. 2019).
I Tyskland fins indikasjoner på at ungfugloverlevelsen er redusert, noe som kan henge sammen med lavere tilgang på viktig byttefisk (Szostek & Becker 2012, Vedder et al. 2019).
Bestandsutviklingen globalt er usikker. I Nord-Amerika er bestanden blitt kraftig redusert de siste 40 årene (BirdLife International 2018).
På europeisk basis er bestanden stor, men det er usikkert om den er økende eller minkende (Birdlife International 2021).
Demografi
Overlevelse
Overlevelsen til voksne er høy, opptil 0,90 – 0,92 (Szostek & Becker 2012). Overlevelsen av ungfugl er lavere enn for voksne, men hvor i årssyklusen individer faller fra er ukjent (Szostek & Becker 2012).
Reproduksjon
Tyske makrellterner kommer tilbake til hekkeplassene fra overvintringsområdene i midten av april (Kürten et al. 2022). Norske makrellterner er sannsynligvis noe senere.
Makrellterner i Tyskland begynner å søke etter partner så fort de ankommer hekkeplassene, og er den tidligere partneren mer enn fem dager senere, finner de seg en ny partner (Ludwigs & Becker 2005).
Stedstilknytning til kolonien er høy, i en tysk koloni så høy som 90% (Szostek & Becker 2012).
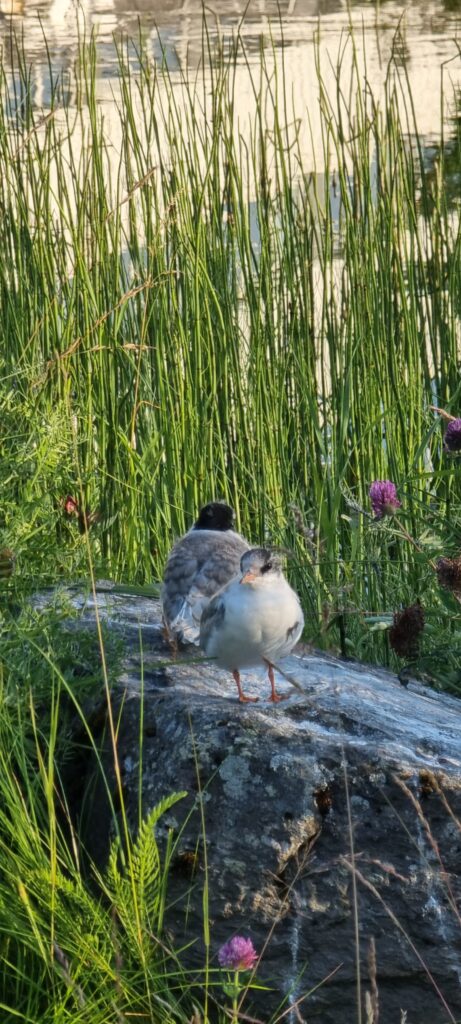
Makrellterna legger et kull på to til tre egg i et reir på bakken, gjerne i sand eller grus, som både hannen og hunnen ruger i 22-26 dager (Dansk ornitologisk forening 2026). Nærliggende vegetasjon kan brukes som skjul av ungene (Severinghaus 1983).
Makrellterna kan også hekke på kunstige plasser, som moloer, tak, flåter og plattformer (Bouwmeester & van Dijk 1991, Dunlop et al. 1991).
I Norge hekker de f.eks. både urbant og på flåter i Finnsnes i Senja kommune (Nilsson et al. under arbeid).
Hekketidspunktet varier med alder, der de yngste og eldste aldersklassene hekker senere enn de i mellomsjiktet og tidligere kuller er større enn senere (Nisbet et al. 1984).
Makrellterna begynner å hekke ved tre til fire års alder (Szostek & Becker 2012). Begge kjønnene mater ungene og søker føde innenfor 3-11 km fra kolonien (Nisbet 1983, Safina 1990).
Ungene er flygeferdige 22-29 dager etter klekking og blir matet ytterliggere 10-20 dager av foreldrene (Nisbet 1976).
Etter vel overstått hekking forlater tyske makrellterner hekkeplassene i begynnelsen av september (Kürten et al. 2022).
Næringsvalg
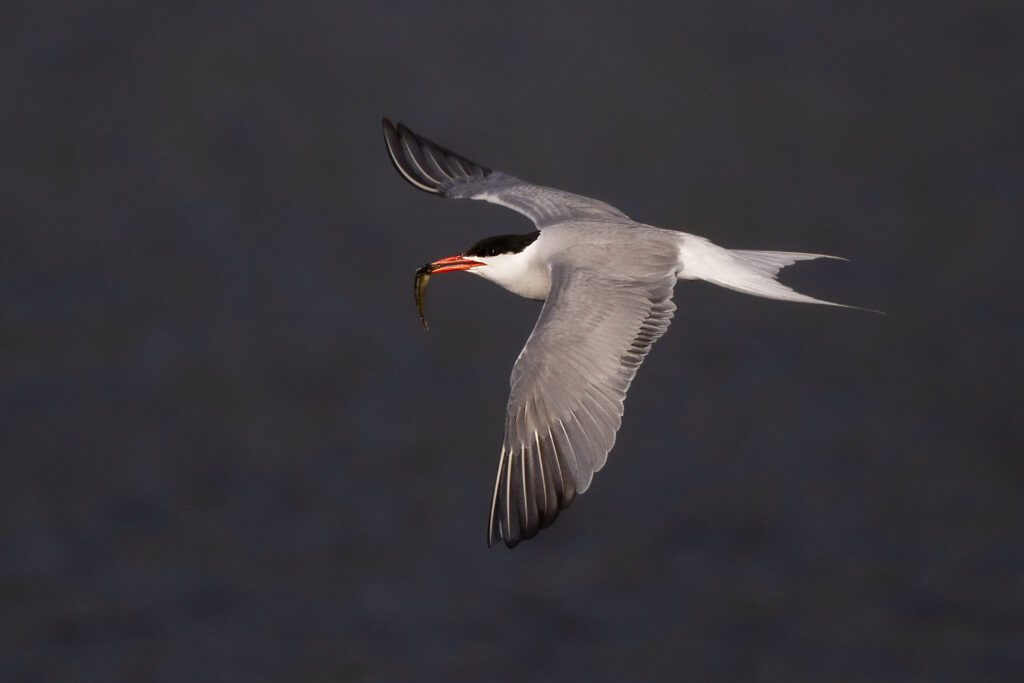
Makrellterna er på nivå to eller tre som konsument i næringsnettet, og en opportunistisk predator av forskjellige arter småfisk.
Den søker etter byttedyr fra luften som den stuper ned i vannet etter. Den fødesøker overåpne vannflater i både ferskvann og saltvann (Stokke et al. 2021).
I saltvann regnes fisk fra sildefamilien Clupea, spesielt sild og brisling, og torskefamilien Gadidae, samt kutlinger Gobidae som høykvalitetsmat, men de spiser også tobis Ammodutidae, nålefisker Syngmathidae og sandreker Crangon crangon (Dänhardt et al. 2011, Robertson et al. 2014, Uttley et al. 1989).
Lenger sør i Europa langs Atlanterhavskysten spiser makrellterna trompetfisk Macroramphosus sp, villsvinfisk Capros aper, lysprikkfisker og ulike makrellarter; selv insekter er funnet i gulpeboller hos makrellterne (Granadeiro et al. 2002).
Sammenlignet med rødnebbterna, tar makrellterna større byttefisk (Robertson et al. 2016). I ferskvann er krøkle Osmerus eperlanus et attraktivt bytte (Limmer & Becker 2009).
Påvirkningsfaktorer og trusler
Selv om makrellterna har et svært aggressivt koloniforsvar av egg og unger, så er den utsatt for predasjon, spesielt fra fremmede arter som mink (Nordström et al. 2003, Nordström et al. 2004). Fjerning av mink som et naturrestaureringstiltak har vært svært vellykket i Skottland (Ratcliffe et al. 2008).
Med økende urbanisering kan også inntog av brunrotte Rattus norvegicus på hekkeplassene ha en negativ effekt på antallet hekkende makrellterner (Bregnballe et al. 2022). Spesielt alvorlig er det de steder der brunrotte ikke er naturlig forekommende, men har blitt introdusert (Lamelas-Lopez et al. 2021).
Makrellterna er også utsatt for predasjon av egg og unger fra store måker, spesielt i mindre kolonier (Hernández Matías & Ruiz 2003), noe som kan lede til en raskere nedgang i bestanden de steder den allerede er sårbar.
Makrellterna ser ut til å være spesielt sårbar for utbrudd av fugleinfluensa. Utbruddet av fugleinfluensa i 2021-2022 førte til 40% bestandsnedgang i Storbritannia (Tremlett et al. 2024), og tilsvarende nedgang i flere tyske kolonier (Pohlmann et al. 2023).
Makrellterna var tidlig foreslått som en god indikator for å måle kvikksølv i kystmiljøet (Monteiro et al. 1995), siden den akkumulerer kvikksølv fra dietten, ofte i mengder høyere enn terskelen for når man kan observere negativ påvirkning (Bertram et al. 2024, Cotin et al. 2011). Til forskjell fra mange måker, spiser ikke makrellterna fiskeavfall fra fiskebåter, og deres kvikksølvnivåer kommer derfor som oftest ikke fra bunnlevende fisk som ofte inneholder høyere nivåer enn pelagisk og juvenil fisk (Albertos et al. 2020, Arcos et al. 2002, Martínez-Abraín et al. 2002, Szostek & Becker 2015). Noen studier viser til kvikksølvnivåer som muligens kan indikere at makrellterner faktisk spiser fiskeavfall (Cotin et al. 2011), men i norske farvann er det sjelden at terner følger fiskebåter eller spiser fiskeavfall (Martínez-Abraín et al. 2002). Forbudet mot utkast av fiskeavfall har derfor sannsynligvis liten effekt på makrellterna (Martínez-Abraín et al. 2002).
Makrellterna er også sårbar for persistente organiske miljøgifter (POPs), som for eksempel PCB. POPs kan gi tynnere eggeskall og lede til misdannelser i embryo og unger (Gilbertson & Fox 1977, Hoffman et al. 1998). Etter OSPAR konvensjonen i 2010 overvåkes hekkende makrellterne for POPs (OSPAR 2010).
Hekkesuksessen er spesielt sårbar for tilgangen på byttefisk som sild og brisling (Dänhardt & Becker 2011, Szostek & Becker 2012, Vedder et al. 2019).
I tillegg, er førstegangshekkere også sårbare for miljøpåvirkninger, sannsynligvis knyttet til værforholdene under vårtrekket (målt som storskala klimavariabler; Szostek et al. 2015).
Der er også indikasjoner på at primærproduksjonen i overvintringsområdene påvirker sannsynligheten for rekruttering den påfølgende hekkesesongen hos førstegangshekkere (Szostek & Becker 2015).
Hvordan forhold på overvintringsområdene og under trekket påvirker overlevelsen er lite kjent i detalj, men som følge av klimaendringene er det indikasjoner på at makrellternen kommer tidligere til koloniene og begynner å hekke tidligere (Wanless et al. 2009), men enkelte steder hekker den også senere nå enn før (Dobson et al. 2017). Forhold på overvintringsområdene kan føre til forsinket ankomst til hekkeplassene og påvirke rekrutteringen (Dobson et al. 2017, Szostek & Becker 2015) og storskala klimaindikatorer påvirker ankomsttiden på hekkeplassene om våren (Szostek et al. 2015).
Der makrellterna har mulighet til å hekke uten menneskelige forstyrrelser kan den også kolonisere nye områder, som i sørøstre Spania (Paracuellos & Nevado 2003).
Havvindutbygging kan bidra til bestandsnedganger hos makrellterne. Energikostnaden for å fly rundt eller over et vindkraftanlegg, den såkalte barriereeffekten, kan bli spesielt høy for terner på fødesøk (Masden et al. 2010). Terner både trekker og søker etter føde i nedre del av rotorsonen, noe som kan gjøre dem sårbare for kollisjoner med havvindturbiner (Christensen et al. 2004, Krijgsveld et al. 2005, Leopold et al. 2004). I tillegg har terner blitt observert sittende på turbinbasen, der de har brukt den som utgangspunkt for fødesøk og til og med mating av partner under etableringsfasen av hekkesesongen (Stienen et al. 2024).
Makrellterna kan også være utsatt for å kollidere med strømkabler (Henderson et al. 1996).
Referanser
Albertos, S., Berenguer, N.I., Sánchez-Virosta, P., Gómez-Ramírez, P., Jiménez, P., Torres-Chaparro, M.Y., Valverde, I., Navas, I., María-Mojica, P. & García-Fernández, A.J. 2020. Mercury exposure in birds linked to marine ecosystems in the Western Mediterranean. Archives of environmental contamination and toxicology 79(4): 435–453.
Anker-Nilssen, T., Barrett, R., Lorentsen, S., Strøm, H., Bustnes, J., Christensen-Dalsgaard, S., Descamps, S., Erikstad, K., Fauchald, P. & Hanssen, S. 2015. SEAPOP. De ti første årene. Nøkkeldokument 2005-2014. SEAPOP, Norsk institutt for naturforskning, Norsk Polarinstitutt & Tromsø Museum–Universitetsmuseet. Trondheim, Tromsø.
Arcos, J., Ruiz, X., Bearhop, S. & Furness, R. 2002. Mercury levels in seabirds and their fish prey at the Ebro Delta (NW Mediterranean): the role of trawler discards as a source of contamination. Marine Ecology Progress Series 232: 281–290.
Bakken, V., Runde, O. & Tjørve, E. 2003. Norsk Ringmerkingsatlas, vol. 1 lommer–alkefugler. Stavanger Museum, Stavanger.
Banks, P.B., Nordström, M., Ahola, M., Salo, P., Fey, K. & Korpimäki, E. 2008. Impacts of alien mink predation on island vertebrate communities of the Baltic Sea Archipelago: review of a long-term experimental study. Boreal environmental Research 13: 3–16.
Becker, P.H. & Ludwigs, J.-D. 2004. Sterna hirundo Common tern. BWP Update. s 91–137.
Bergan, M., Falch, U.A., Andersen, G.S. & Andersen, T. 2025. Hekkende sjøfugl i indre og midtre Oslofjord 2025. BirdLife Norge, avd Oslo og Akershus.
Bertram, J., Bichet, C., Moiron, M., Schupp, P.J. & Bouwhuis, S. 2024. Sex-and age-specific mercury accumulation in a long-lived seabird. Science of the Total Environment 927: 172330.
BirdLife International. 2018. Species factsheet: Common tern Sterna hirundo. https://datazone.birdlife.org/species/factsheet/common-tern-sterna-hirundo. Besøkt 2026.02.05.
Birdlife International. 2021. European Red List of Birds. Luxenbourg: Publications Office of the European Union. s 1–72.
Bouwmeester, J. & van Dijk, J. 1991. Roof-nesting of Common Tern Sterna hirundo at Aalsmeer. Limosa 64: 25–26.
Bregnballe, T., Sunde, P. & Clausen, K.K. 2022. Occurrence of rats and their impacts on colonial waterbirds in a Danish fjord. Ornis Fennica 99(2–3): 37–51.
Christensen, T.K., Hounisen, J.P., Clausager, I. & Petersen, I.K. 2004. Visual and radar observations of birds in relation to collision risk at the Horns Rev offshore wind farm. Annual status report 2003. NERI report. National Environmental Research Institute Denmark. https://tethys.pnnl.gov/publications/visual-radar-observations-birds-relation-collision-risk-horns-rev-offshore-wind-farm
Cotin, J., García-Tarrasón, M., Sanpera, C., Jover, L. & Ruiz, X. 2011. Sea, freshwater or saltpans? Foraging ecology of terns to assess mercury inputs in a wetland landscape: the Ebro Delta. Estuarine, Coastal and Shelf Science 92(1): 188–194.
Cuthbert, F. & Wires, L. 2002. Common Tern breeding populations: A review of Common Tern band recovery data 1922–2000. Final report to Minnesota Cooperative Fish and Wildlife Research Unit. . University of Minnesota.
Dansk ornitologisk forening. 2026. Fjordterne Sterna hirundo. https://dofbasen.dk/danmarksfugle/art/06150. Besøkt 2026.02.26.
Dittmann, T., Zinsmeister, D. & Becker, P.H. 2005. Dispersal decisions: common terns, Sterna hirundo, choose between colonies during prospecting. Animal Behaviour 70: 13–20.
Dobson, F.S., Becker, P.H., Arnaud, C.M., Bouwhuis, S. & Charmantier, A. 2017. Plasticity results in delayed breeding in a long‐distant migrant seabird. Ecology and Evolution 7(9): 3100–3109. https://doi.org/10.1002/ece3.2777
Dunlop, C.L., Blokpoel, H. & Jarvie, S. 1991. Nesting rafts as a management tool for a declining common tern (Sterna hirundo) colony. Colonial Waterbirds: 116–120.
Dänhardt, A. & Becker, P.H. 2011. Herring and sprat abundance indices predict chick growth and reproductive performance of common terns breeding in the Wadden Sea. Ecosystems 14(5): 791–803. https://doi.org/10.1007/s10021-011-9445-7
Dänhardt, A., Fresemann, T. & Becker, P.H. 2011. To eat or to feed? Prey utilization of Common Terns Sterna hirundo in the Wadden Sea. Journal of Ornithology 152(2): 347–357. https://doi.org/10.1007/s10336-010-0590-0
Fauchald, P., Anker-Nilssen, T., Barrett, R., Bustnes, J.O., Bårdsen, B.-J., Christensen-Dalsgaard, S., Descamps, S., Engen, S., Erikstad, K.E. & Hanssen, S.A. 2015. The status and trends of seabirds breeding in Norway and Svalbard NINA Rapport 1151. Norsk institutt for naturforskning.
Franks, S., Fiedler, W., Arizaga, J., Jiguet, F., Nikolov, B., van der Jeugd, H., Ambrosini, R., Aizpurua, O., Bairlein, F., Clark, J., Fattorini, N., Hammond, M., Higgins, D., Levering, H., Skellorn, W., Spina, F., Thorup, K., Walker, J., Woodward, I. & Baillie, S.R. 2022. Online Atlas of the movements of Eurasian-African bird populations. EURING/CMS. https://migrationatlas.org. Besøkt 2026.05.21.
Gilbertson, M. & Fox, G.A. 1977. Pollutant-associated embryonic mortality of Great Lakes herring gulls. Environmental Pollution (1970) 12(3): 211–216.
González-Solís, J., Becker, P.H., Wendeln, H. & Wink, M. 2005. Hatching sex ratio and sex specific chick mortality in common terns Sterna hirundo. Journal of Ornithology 146(3): 235–243. https://doi.org/10.1007/s10336-005-0084-7.
Granadeiro, J.P., Monteiro, L.R., Silva, M.C. & Furness, R.W. 2002. Diet of common terns in the Azores, Northeast Atlantic. Waterbirds 25(2): 149–155. https://doi.org/10.1675/1524-4695.
Green, M., Haas, F. & Lindström, Å. 2024. Övervakning av fåglarnas populationsutveckling:: Årsrapport för 2023.
Henderson, I.G., Langston, R.H. & Clark, N.A. 1996. The response of common terns Sterna hirundo to power lines: an assessment of risk in relation to breeding commitment, age and wind speed. Biological Conservation 77(2-3): 185–192. https://doi.org/0006-3207/96/$15.00+0.00.
Hernández Matías, A. & Ruiz, X. 2003. Predation on common tern eggs by the yellow-legged gull at the Ebro Delta. Scientia Marina 67: 95–101.
Hoffman, D.J., Melancon, M.J., Klein, P.N., Eisemann, J.D. & Spann, J.W. 1998. Comparative developmental toxicity of planar polychlorinated biphenyl congeners in chickens, American kestrels, and common terns. Environmental Toxicology and Chemistry 17(4): 747–757.
Houston, C.S. 2000. Migration of Common Terns banded in Western Canada. North American Bird Bander 25(1): 2.
Hyvärinen, E., Juslén, A., Kemppainen, E., Uddström, A. & Liukko, U.-M. 2019. The 2019 Red list of Finnish species. Ympäristöministeriö & Suomen ympäristökeskus, Helsinki.
Kiat, Y., Haviv, E., Perlman, Y. & Schekler, I. 2026. Connectivity between breeding sites, wintering areas, and migration routes in Common Terns (Sterna hirundo) breeding in the Western Palaearctic. Ibis. https://doi.org/0.1111/ibi.70062.
Krijgsveld, K., Lensink, R., Schekkerman, H., Wiersma, P., Poot, M.J., Meesters, E. & Dirksen, S. 2005. Baseline studies North Sea wind farms: fluxes, flight paths and altitudes of flying birds 2003-2004. Bureau Waardenburg.
Kürten, N., Schmaljohann, H., Bichet, C., Haest, B., Vedder, O., González-Solís, J. & Bouwhuis, S. 2022. High individual repeatability of the migratory behaviour of a long-distance migratory seabird. Movement Ecology 10(1): 5. https://doi.org/10.1186/s40462-022-00303-y
Lamelas-Lopez, L., Pietrzak, M., Ferreira, M. & Neves, V.C. 2021. Threats and conservation status of common and roseate terns Sterna hirundo/S. dougallii in the Azores: A case study for Terceira Island. Marine Ornithology 49: 301–309.
Leopold, M.F., Camphuysen, C.J., van Lieshout, S.M.J., ter Braak, C.J.F. & Dijkman, E.M. 2004. Baseline studies North Sea wind farms; Lot 5 marine birds in and around the future site nearshore windfarm (NSW). Alterra-rapport. Wageningen.
Limmer, B. & Becker, P.H. 2009. Improvement in chick provisioning with parental experience in a seabird. Animal Behaviour 77(5): 1095–1101. https://doi.org/10.1016/j.anbehav.2009.01.015.
Ludwigs, J.-D. & Becker, P.H. 2005. What do pairing patterns in common tern, Sterna hirundo, recruits reveal about the significance of sex and breeding experience? Behavioral Ecology and Sociobiology 57(5): 412–421.
Martínez-Abraín, A., Maestre, R. & Oro, D. 2002. Demersal trawling waste as a food source for Western Mediterranean seabirds during the summer. ICES Journal of Marine Science 59(3): 529–537. https://doi.org/0.1006/jmsc.2001.1175.
Masden, E.A., Haydon, D.T., Fox, A.D. & Furness, R.W. 2010. Barriers to movement: modelling energetic costs of avoiding marine wind farms amongst breeding seabirds. Marine Pollution Bulletin 60(7): 1085–1091.
Monteiro, L., Furness, R. & Del Nevo, A. 1995. Mercury levels in seabirds from the Azores, mid-north Atlantic Ocean. Archives of Environmental Contamination and Toxicology 28(3): 304–309.
Nisbet, I. 1976. Early stages in postfledging dispersal of Common Terns. Bird Banding 47(2): 15.
Nisbet, I.C. 1983. Territorial feeding by common terns. Colonial Waterbirds 6: 64–70.
Nisbet, I.C., Winchell, J.M. & Heise, A.E. 1984. Influence of age on the breeding biology of Common Terns. Colonial Waterbirds: 117–126.
Nordström, M., Högmander, J., Laine, J., Nummelin, J., Laanetu, N. & Korpimäki, E. 2003. Effects of feral mink removal on seabirds, waders and passerines on small islands in the Baltic Sea. Biological Conservation 109(3): 359–368.
Nordström, M., Laine, J., Ahola, M. & Korpimäki, E. 2004. Reduced nest defence intensity and improved breeding success in terns as responses to removal of non-native American mink. Behavioral Ecology and Sociobiology 55(5): 454–460.
Olsen, K. 2025. Overvåking av hekkende sjøfugl i Vest-Agders sjøfuglreservater. BirdLife Norge, avd Vest-Agder.
OSPAR. 2010. The Ospar system of ecological quality objectives for the North Sea, 162159.
Ottosson, U., Wirdheim, A., Elmberg, J., Green, M., Gustafsson, R., Haas, F., Liljebäck, N., Lindström, Å., Nilsson, L., Ottvall, R., Svensson, M., Svensson, S. & Tjernberg, M. 2025. Fåglarna i Sverige – antal och förekomst. 2. utg. Avium förlag AB.
Paracuellos, M. & Nevado, J.C. 2003. Nesting seabirds in SE Spain: distribution, numbers and trends in the province of Almería. Scientia Marina 67(Supplement 2): 125–128.
Pohlmann, A., Stejskal, O., King, J., Bouwhuis, S., Packmor, F., Ballstaedt, E., Hälterlein, B., Hennig, V., Stacker, L. & Graaf, A. 2023. Mass mortality among colony-breeding seabirds in the German Wadden Sea in 2022 due to distinct genotypes of HPAIV H5N1 clade 2.3. 4.4 b. Journal of General Virology 104(4): 001834. https://doi.org/10.1099/jgv.0.001834.
Ratcliffe, N., Craik, C., Helyar, A., Roy, S. & Scott, M. 2008. Modelling the benefits of American Mink Mustela vison management options for terns in west Scotland. Ibis 150: 114–121.
Robertson, G., Bolton, M., Grecian, W., Wilson, L., Davies, W. & Monaghan, P. 2014. Resource partitioning in three congeneric sympatrically breeding seabirds: foraging areas and prey utilization. The Auk: Ornithological Advances 131(3): 434–446. https://doi.org/10.1642/AUK-13-243.1
Robertson, G.S., Bolton, M. & Monaghan, P. 2016. Influence of diet and foraging strategy on reproductive success in two morphologically similar sympatric seabirds. Bird Study 63(3): 319–329. https://doi.org/10.1080/00063657.2016.1183112.
Safina, C. 1990. Foraging habitat partitioning in Roseate and Common Terns. The Auk 107(2): 351–358.
Schippers, P., Buij, R., Schotman, A., Verboom, J., van der Jeugd, H. & Jongejans, E. 2020. Mortality limits used in wind energy impact assessment underestimate impacts of wind farms on bird populations. Ecology and Evolution 10(13): 6274–6287. https://doi.org/10.1002/ece3.6360.
Severinghaus, L.L. 1983. The breeding ecology and management of common terns (Sterna hirundo) at Oneida Lake (New York). PhD thesis. Cornell University, Itaka.
Shimmings, P. & Øien, I. 2015. Bestandsestimater for norske hekkefugler. NOF-rapport 2015 2: 268.
Stienen, E.W., Courtens, W., Verstraete, H. & Vanermen, N. 2024. Frequent use of offshore wind farms in the southern North Sea by migrating terns. Ardea 112(2): 331–337. https://doi.org/doi.org/10.5253/arde.2024.a7
Stokke, B., Dale, S., Jacobsen, K.-O., Lislevand, T., Solvang, R. & Strøm, H. 2021. Fugler: Vurdering av makrellterne Sterna hirundo for Norge. https://lister.artsdatabanken.no/rodlisteforarter/2021/31752. Besøkt.
Szostek, K.L. & Becker, P.H. 2012. Terns in trouble: demographic consequences of low breeding success and recruitment on a common tern population in the German Wadden Sea. Journal of Ornithology 153(2): 313–326.
Szostek, K.L. & Becker, P.H. 2015. Survival and local recruitment are driven by environmental carry-over effects from the wintering area in a migratory seabird. Oecologia 178(3): 643–657. https://doi.org/10.1007/s00442-015-3298-2
Szostek, K.L., Becker, P.H., Meyer, B.C., Sudmann, S.R. & Zintl, H. 2014. Colony size and not nest density drives reproductive output in the Common Tern S terna hirundo. Ibis 156(1): 48–59.
Szostek, K.L., Bouwhuis, S. & Becker, P.H. 2015. Are arrival date and body mass after spring migration influenced by large-scale environmental factors in a migratory seabird? Frontiers in Ecology and Evolution 3: 42. https://doi.org/10.3389/fevo.2015.00042.
Tremlett, C.J., Cleasby, I.R., Bolton, M. & Wilson, L.J. 2024. Declines in UK breeding populations of seabird species of conservation concern following the outbreak of high pathogenicity avian influenza (HPAI) in 2021–2022. Bird Study 71(4): 293–310. https://doi.org/10.1080/00063657.2024.2438641.
Uttley, J., Monaghan, P. & White, S. 1989. Differential effects of reduced sandeel availability on two sympatrically breeding species of tern. Ornis Scandinavica 20: 273–277.
Valkama, J., Saurola, P., Lehikoinen, A., Lehikoinen, E., Piha, M., Sola, P. & Velmala, W. 2014. The Finnish Bird Ringing Atlas Vol. II. Finnish Museum of Natural History and Ministry of Environment, Helsinki.
Vedder, O., Zhang, H., Dänhardt, A. & Bouwhuis, S. 2019. Age-specific offspring mortality economically tracks food abundance in a piscivorous seabird. The American Naturalist 193(4): 588–597. https://doi.org/10.1086/702304
Vikstrøm, T., Eskildsen, D.P. & Jørgensen, M.F. 2023. Overvågning af de almindelige fuglearter i Danmark 1975-2023. Årsrapport for punkttællingsprgrammet. Dansk ornitologisk forening.
Wanless, S., Frederiksen, M., Walton, J. & Harris, M.P. 2009. Long‐term changes in breeding phenology at two seabird colonies in the western North Sea. Ibis 151(2): 274–285.