Storskarv
Engelsk navn:
Great Cormorant
Vitenskapelig navn:
Phalacrocorax carbo
ForfatterE:
Sist oppdatert:
Beskrivelse
Storskarv er en stor sjøfugl som måler 80-100 cm i lengde og veier mellom 2 600 og 3 700 gram. Kjønnene er like, men hannene er litt større enn hunnene.
I Norge finnes det to underarter av storskarv. Underarten Phalacrocorax carbo carbo, vanligvis kalt storskarv (heretter: nominatformen for å unngå forveksling med artsnavn), hekker fra Hordaland og nordover, mens Phalacrocorax carbo sinensis, også kalt mellomskarv, hekker fra Svenskegrensen i sør langs kysten til Rogaland.
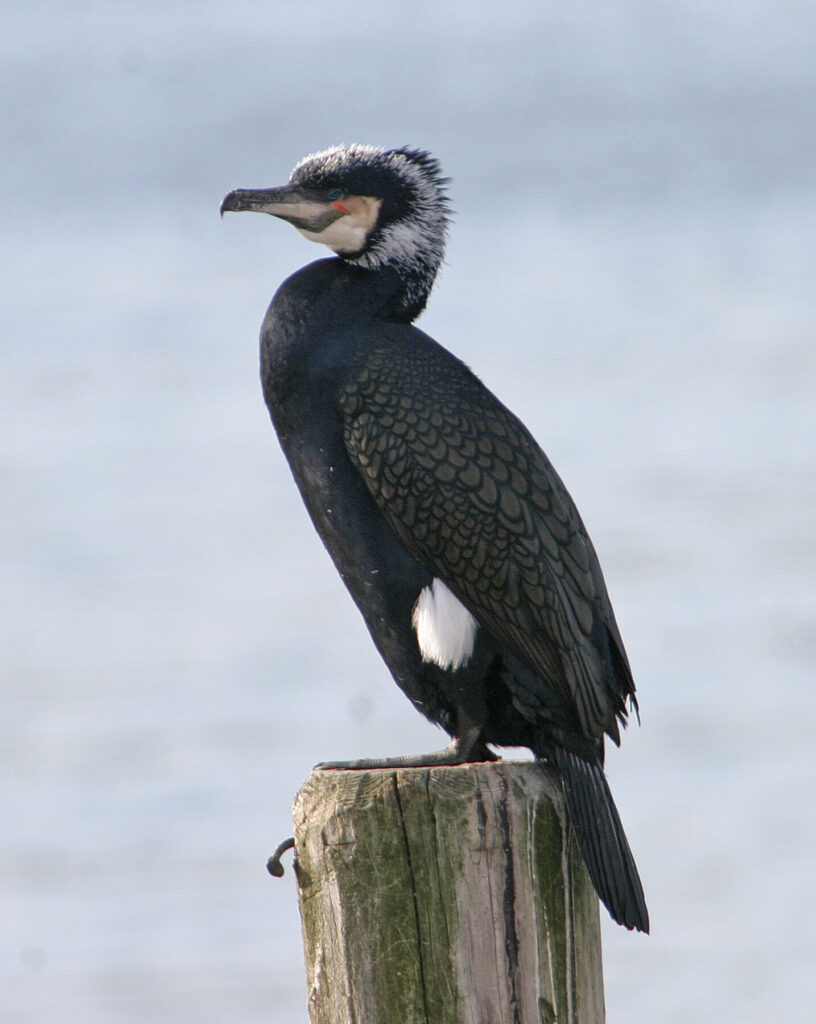
Underartene har lik utseende med en brunlig fjærdrakt om vinteren, mens de er forskjellige i hekkeperioden. I hekkeperioden får begge underarter en svart fjærdrakt med metallisk glans, tydelig hvitt felt på strupe og kinn samt en hvit flekk på låret. Mellomskarven har i tillegg en tilnærmet hvit hals og bakhode med en antydning til en fjærtopp, mens nominatformen har mindre hvitt i bakhodet og på halsen. Det er også andre, mer subtile, forskjeller som vi ikke kommer inn på her.
Unge fugler har en brun fjærdrakt med lys buk og strupe. Sammenliknet med sin nære slektning toppskarv er begge underarter av storskarven større med et kraftigere nebb, mer hvit rundt hodet og en større gul munnvik.
Storskarvens fjærdrakt er ikke vanntett, og de er derfor avhengige av å tørke fjærene etter at de har dykket etter fisk, og man ser de da ofte med utslåtte vinger, gjerne på sjømerker.
Relevante lenker:
Rødlistestatus for storskarv
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Nasjonalt
| Region/område | Estimert antall (par) | År | Referanse |
|---|---|---|---|
| Fastlandet | 13 748 | ||
| Barentshavet | 2 261 | 2026 | Det nasjonale overvåkingsprogrammet for sjøfugl |
| Norskehavet | 6 487 | 2026 | Det nasjonale overvåkingsprogrammet for sjøfugl |
| Nordsjøen¹ | 5 000 | 2026 | Det nasjonale overvåkingsprogrammet for sjøfugl |
| Norge totalt | 13 748 |
¹Phalacrocorax carbo carbo og Phalacrocorax carbo sinensis. Eksakte tall fra flytellinger, pluss estimat for Rogaland
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 13 000 | Individ | Synkende (kortsiktig) | 1976 – 2017 | Environment and Climate Change Canada and Birds Canada 2024 |
| Danmark | 30 281 | Par | Synkende (kortsiktig), Økende (langsiktig) | 2024 | Sterup & Bregnballe 2025 |
| England | 3 333 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Finland | 25 000 | Par | Økende (1996-2015) | Finnish Environment Institute 2021, som sitert i BirdLife Suomi 2026 | |
| Grønland | 5 000 | Par | 2005 | Frederiksen 2010 | |
| Island | 4 772 | Par | Økende (kortsiktig) | 2012 | Bregnballe et al. 2014 |
| Nord-Irland (UK) | 561 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Republikken Irland | 4 124 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Russland | 1 750 | Par | 2008 | Strøm et al. 2009 | |
| Skottland | 3 458 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Sverige | 75 000 | Par | Økende (2012-2023) | 2023 | Lundström 2024 |
| Wales | 1 477 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Globalt | 1 400 000–2 100 000 | Individ | Økende (kortsiktig) | 2012 | Wetlands International 2015, som sitert i Birdlife International 2023 |
AON=Apparently Occupied Nests
Hekkeutbredelse
Storskarv har en nesten global utbredelse med hekkeforekomster på Østkysten av Nord-Amerika, vestkysten av Grønland, i store deler av Europa, Afrika, Sentral-Asia og Sør-Asia og Australia. Globalt finnes det seks underarter av storskarven.
Nominatformen Phalacrocorax carbo carbo, har en atlantisk utbredelse og hekker også langs Østkysten av Nord-Amerika, Vestkysten av Grønland, Island, Færøyene og i nordlige deler av Storbritannia. Underarten mellomskarv, har en eurasisk utbredelse og har sin hovedutbredelse i Mellom-Europa og Asia.
Kart: Hekkeutbredelse i ulike deler av Norge. Boblenes størrelse representerer estimert bestandsstørrelse.
Les mer…
Her oppgis våre siste estimater av hekkebestander for denne arten. Vi har tatt utgangspunkt i siste telling fra hver koloni og brukt bestandsutviklingen i regionen til å beregne dagens hekkebestand.
Trekk- og vinterområder
Storskarv beskrives best som «delvis trekkende art», dvs. at noen individer oppholder seg i området rundt hekkekolonien året rundt, mens andre trekker lengre om vinteren. Individene som trekker, forflytter seg typisk ikke mer enn 1000 km.
Nominatformen oppholder seg langs kysten hele året, og basert på ringmerkingsdata trekker noen bestander nordover i Barentshavet, mens andre beveger seg sørover.
Basert på ringmerkingsgjenfunn overvintrer en del av de norske storskarvene i Kattegat og Østersjøen, mens noen få fugler trekker så langt sør som Middelhavsregionen.
En undersøkelse av storskarv felt i Mjøsaområdet i 2017 viste at ca. 10 % av de felte skarvene var av nominatformen (S.-H. Lorentsen pers. comm.).
Mellomskarven oppholder seg i langt større utstrekning innlands enn nominatformen, f.eks. ved større innsjøer eller elver, men de fleste ringmerkingsgjenfunn fra mellomskarv er fra kysten.
Noen av de norske mellomskarvene trekker inn i Skagerrak-området og inn i Danske og Svenske farvann om vinteren. Det er få ringmerkingsfunn av norske storskarv i Nederland, Storbritannia, Finland og Russland.
Bestandsutvikling
Hekkebestanden av storskarv langs den norske fastlandskysten ble anslått til omtrent 21 300 par i 2013 (Fauchald et al. 2015). Arten hekker ikke på Jan Mayen og Svalbard. Storskarvbestanden i Barentshavet har siden 1980 variert mellom ca. 2 500 og 9 000 par og lå ved siste estimat i 2013 på ca. 5 000 par, men har gått ned til 2 261 par i 2026. I Norskehavet har bestanden mellom 1980 og 2008 variert mellom 29 000 par og 45 000 par.
Fra 2008 til 2013 droppet bestanden fra omtrent 35 000 par til 13 000 par. I 2026 ble bestanden i Norskehavet anslått til rundt 6 500 par. Langs kysten av Nordsjøen og Skagerrak manglet storskarv som hekkefugl frem til ca. 1997, og har siden tatt seg opp til 2 730 par i 2013 og ca. 5 000 par i 2026. En del av disse fugler tilhører underarten sinensis og telles dermed som mellomskarv, mens det langs Nordsjøen også hekker fugler av nominatformen carbo.
Estimerte årlige hekkebestander på nøkkellokalitetene. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Estimerte årlige hekkebestander. Superskript ts betyr at estimatet er et totalestimat for hele populasjonen innenfor valgte nøkkellokalitet, og i betyr estimat for størrelsen av en hekkekoloni/lokalitet som er del av en større bestand i valgte nøkkellokalitet. For noen arter og kolonier er tallene basert på en totaltelling, mens andre estimat er basert på telling av prøvefelt (deler av en bestand), hvorav total hekkbestand er beregnet vha. utvikling i prøvefelt og tidligere tall på total hekkebestand.
Demografi
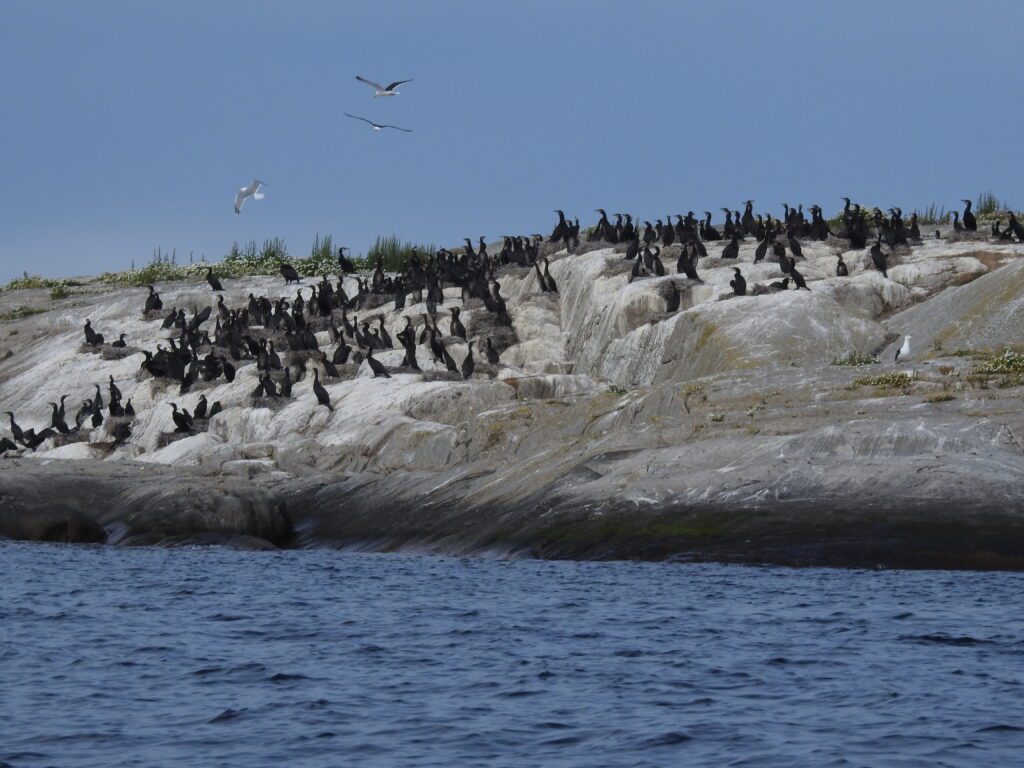
Storskarv hekker i kolonier av varierende størrelse, fra et titalls til flere hundre par. Nominatformen hekker på holmer eller på kystklipper, mens mellomskarv både hekker i trær (f.eks. i Østfold), ofte sammen med gråhegrer, men også på holmer langs kysten. Det er svært få innlands hekkefunn av mellomskarv i Norge.
Alder ved kjønnsmodning er 4-5 år. Både hanner og hunner bidrar med reirbygging. Eggleggingen skjer typisk i mai, og hunnen legger typisk 2-4 egg (1-6).
Antall egg varierer mellom år, og har i en koloni på Røst (nominatformen) ligget på i gjennomsnitt 2,89 egg, mens gjennomsnittet i en koloni (mellomskarv) på Rauna i Agder har ligget på 3,33 egg (Lorentsen et al. 2022).
Rugetiden er 28-31 døgn. Ungene blir flygedyktige etter omtrent 50 dager, men er avhengig av foreldrene i ytterligere 40-50 dager. Hekkesuksess varierer også mellom år, og på Rauna ble i gjennomsnitt 1,80 unge/reir flygedyktig, mens det mangler data for hekkesuksess fra andre kolonier i Norge (Lorentsen et al. 2022).
Beregnet årlig reproduksjon på nøkkellokalitetene. Enhet avhenger av art og lokalitet. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Hekkesuksess er definert på flere ulike måter avhengig av utvalgte arters livshistorie og overvåkingsmetodikk for de ulike nøkkellokalitetene. Alkefuglene (bortsett fra teist), i tillegg til havhest og havsule, legger kun ett egg pr par, mens de resterende har en kullstørrelse fra to og oppover. For de kolonihekkende artene, f.eks. lunde og havsule, er hekkesuksess målt på et utvalg av populasjonen, og de årlige estimatene har derfor et konfidensintervall som beskriver usikkerheten på estimatet. For noen arter/områder er hekkesuksess målt på samtlige individ i populasjonen, og det er derfor ikke noe usikkerhet knyttet til de årlige verdiene av hekkesuksess.
Næringsvalg
Storskarv lever hovedsakelig av fisk som den fanger mellom havoverflaten og rundt 30 meters dybde (Grémillet & Wilson 1999). Storskarv er en opportunist og dietten varierer geografisk og over tid avhengig av det som er tilgjengelig (Lorentsen et al. 2004, Lorentsen et al. 2022).
I Trøndelag og Nord-Norge har studier vist at torskefisk, deriblant torsk og sei dominerer dietten (Lorentsen et al. 2004, Lorentsen et al. 2022), mens leppefisk dominerte dietten av mellomskarvene i Sør-Norge (Dehnhard et al. 2021).
Arten blir i hele utbredelsesområdet sett på som konkurrent til fritids- og kommersielle fiskere. Analyser i Norge har derimot vist at storskarv spiser hovedsakelig unge årsklasser av sei og torsk som er mindre enn 25 cm i lengde.
Artens uttak er beregnet til mindre enn 2% av fiskebestanden av de to artene (Dehnhard et al. 2021). Sammenliknet med kommersielt fiskeri var andelen torsk og sei som ble tatt av storskarv veldig liten (Dehnhard et al. 2021), og det er usannsynlig at økning av mellomskarvbestander i Nordsjøen og Skagerrak har noe å gjøre med kollaps av torsk i regionen rundt Oslofjorden.
Studien fant derimot et stor konfliktspotensiale i forhold til uttak av leppefisk. Leppefisk blir brukt av oppdrettsindustrien som rensefisk, og mellomskarvene spiser omtrent samme mengde leppefisk som det som tas ut årlig for kommersiell bruk.
Påvirkningsfaktorer og trusler
Storskarv er sårbar for mange forskjellige trusler. Jakt og forurensing spesielt med DDT forårsaket kollaps av mellomskarv-bestanden i Sentral-Europa rundt 1960 (Bregnballe 1996). Arten er pga. sin høye posisjon i næringsnettet fortsatt utsatt for høye nivåer av miljøgifter, og i en studie fra Middelhavsregionen er det påvist så høye nivåer av kvikksølv at det kan negativt påvirke utviklingen av egg og unger, og dermed evnen til reproduksjon (Albertos et al. 2020). Det er også funnet høye nivåer av PFAS og PFOS i egg fra mellomskarv i Sverige (Nordén et al. 2013).
Også plastforurensing er en trussel for storskarv. En studie fra Irland viste at 7% av storskarv-ungene gulpet opp plastpartikler under ringmerking, noe som indikerer at storskarv enten forveksler plast med maten eller får det i seg via fisk (Acampora et al. 2017). Det er ukjent om nivået av plast i storskarv kan ha negative effekter, og plast-inntak er så langt ikke påvist hos storskarv i Norge (Benjaminsen et al. 2024). Storskarvene bruker ofte plast som reirmateriale (O’Hanlon et al. 2021, Jylhä-Vuorio et al. 2024). Mens data fra Norge mangler, inneholdt 58% av reirene i en studie utført i Finskebukta plast (Jylhä-Vuorio et al. 2024). Spesielt fiskenett og tau kan fører til at unge eller voksenfugl setter seg fast og kveles eller sultes til døde.
Storskarvene som hekker på holmer og skjær er veldig sensitiv mot forstyrrelser i hekkeperioden. Spesielt er forstyrrelser fra båter som kommer for nært kolonien en stor trussel. Hvis en koloni blir forstyrret flere ganger gir fuglene opp hekkingen. I slike tilfeller etablerer de seg ofte i nye områder påfølgende år. Forstyrrelser av kolonier og punktering av egg blir også brukt som metode for å kontrollere den økende bestanden av mellomskarv i flere andre land.
Generelt er konflikter med mennesker en av de største truslene for storskarv per i dag. Slike konflikter er gjerne knyttet til en forestilling om at storskarvene konkurrerer med mennesker om fisk som har enten kommersiell verdi eller er av interesse for fritidsfiskere.
Storskarv blir ofte tiltrukket av oppdrettsanlegg (Carss 1994), noe som kan føre til at fuglene setter seg fast i beskyttelsesnett over merdene. Det er heller ikke uvanlig at det blir søkt om skadefelling av storskarv rundt oppdrettsanleggene.
Fiskeri utgjør en videre trussel, siden storskarv blir jevnlig tatt som bifangst i kystnært garnfiske (Christensen-Dalsgaard et al. 2019, Glemarec et al. 2020). Til slutt er storskarv, spesielt nominatformen, kjent for å finne maten i tareskog, og en tidligere studie har vist at taretråling kan ha negativ påvirkning på tilgang på småsei og torskefisk, og negativ påvirkning på storskarv (Lorentsen et al. 2010).
Storskarv kan jaktes i hele landet, men det er mange lokale reguleringer i forhold til utøvelse av jakten.
Referanser
Acampora, H., Newton, S. & O’Connor, I. (2017). Opportunistic sampling to quantify plastics in the diet of unfledged black legged kittiwakes (Rissa tridactyla), northern fulmars (Fulmarus glacialis) and great cormorants (Phalacrocorax carbo). Marine Pollution Bulletin 119(2): 171-174. doi: 10.1016/j.marpolbul.2017.04.016
Albertos, S., Berenguer, N.I., Sánchez-Virosta, P., Gómez-Ramírez, P., Jiménez, P., Torres-Chaparro, M.Y., Valverde, I., Navas, I., María-Mojica, P., García-Fernández, A.J. & Espín, S. (2020). Mercury exposure in birds linked to marine ecosystems in the Western Mediterranean. Archives of Environmental Contamination and Toxicology 79(4): 435-453. doi: 10.1007/s00244-020-00768-1
Benjaminsen, S.C., Dehnhard, N., Herzke, D., Johnsen, A., Anker-Nilssen, T., Bourgeon, S., Collard, F., Langset, M., Christensen-Dalsgaard, S. & Gabrielsen, G.W. (2024). The challenges of opportunistic sampling when comparing prevalence of plastics in diving seabirds: A multi-species example from Norway. Marine Pollution Bulletin 199: 116037. doi: 10.1016/j.marpolbul.2024.116037
BirdLife International, X. (2018). Species factsheet: Great Cormorant. https://datazone.birdlife.org/species/factsheet/great-cormorant-phalacrocorax-carbo. Visited.
BirdLife Suomi, X. (2026). Great Cormorant – Phalacrocorax carbo. https://laji.fi/en/taxon/MX.26043/occurrence. Visited Hentet 12. mars 2026
Bregnballe, T. (1996). Udviklingen i bestanden af mellemskarv i Nord- og Mellemeuropa 1960-1995. Dansk Ornitologisk Forenings Tidsskrift 90: 15-20.
Bregnballe, T., Lynch, J., Parz-Gollner, R., Marion, L., Volponi, S., Paquet, J.-Y., Carss, D.N., van Eerden, M.R. & (eds.). (2014). Breeding numbers of great cormorants Phalacrocorax carbo in the Western Palearctic, 2012-2013. IUCN / Wetlands International Cormorant Research Group Report.
Burnell, D., Perkins, A.J., Newton, S.F., Bolton, M., Tierney, T.D. & Dunn, T.E. (2023). Seabirds Count. A census of breeding seabirds in Britain and Ireland (2015-2021). Lynx Nature Books.
Carss, D.N. (1994). Killing of piscivorous birds at Scottish fin fish farms, 1984–1987. Biological Conservation 68(2): 181-188. doi: 10.1016/0006-3207(94)90349-2
Christensen-Dalsgaard, S., Anker-Nilssen, T., Crawford, R., Bond, A., Sigurðsson, G.M., Glemarec, G., Hansen, E.S., Kadin, M., Kindt-Larsen, L., Mallory, M., Merkel, F.R., Petersen, A., Provencher, J. & Bærum, K.M. (2019). What’s the catch with lumpsuckers? A North Atlantic study of seabird bycatch in lumpsucker gillnet fisheries. Biological Conservation 240: 108278. doi: 10.1016/j.biocon.2019.108278
Dehnhard, N., Langset, M., Aglen, A., Lorentsen, S.-H. & Anker-Nilssen, T. (2021). Fish consumption by great cormorants in Norwegian coastal waters—a human-wildlife conflict for wrasses, but not gadids. ICES Journal of Marine Science 78: 1074-1089. doi: 10.1093/icesjms/fsab004
Fauchald, P., Anker-Nilssen, T., Barrett, R.T., Bustnes, J.O., Bårdsen, B.J., Christensen-Dalsgaard, S., Descamps, S., Engen, S., Erikstad, K.E., Hanssen, S.A., Lorentsen, S.-H., Moe, B., Reiertsen, T.K., Strøm, H. & Systad, G.H. (2015). The status and trends of seabirds breeding in Norway and Svalbard. NINA Report. Norwegian Institute for Nature Research
Frederiksen, M. (2010). Appendix 1: Action plan for seabirds in Western-Nordic areas Report from a workshop in Malmö, Sweden, 4–5 May 2010. TemaNord
Glemarec, G., Kindt-Larsen, L., Lundgaard, L.S. & Larsen, F. (2020). Assessing seabird bycatch in gillnet fisheries using electronic monitoring. Biological Conservation 243: 108461. doi: 10.1016/j.biocon.2020.108461
Grémillet, D. & Wilson, R.P. (1999). A life in the fast lane: energetics and foraging strategies of the great cormorant. Behavioral Ecology 10(5): 516-524. doi: 10.1093/beheco/10.5.516
Jylhä-Vuorio, A., Näkki, P., Setälä, O., Lehikoinen, A. & Lehtiniemi, M. (2024). Incorporation of plastic debris into the nests of great cormorants (Phalacrocorax carbo sinensis) in the Gulf of Finland. Marine Pollution Bulletin 208: 116934. doi: 10.1016/j.marpolbul.2024.116934
Lorentsen, S.-H., Grémillet, D. & Nymoen, G.H. (2004). Annual variation in diet of breeding great cormorants: does it reflect varying recruitment of gadoids? Waterbirds 27(2): 161-169. doi: 10.1675/1524-4695(2004)027[0161:AVIDOB]2.0.CO;2
Lorentsen, S.-H., Sjøtun, K. & Grémillet, D. (2010). Multi-trophic consequences of kelp harvest. Biological Conservation 143(9): 2054-2062. doi: 10.1016/j.biocon.2010.05.013
Lorentsen, S.-H., Anker-Nilssen, T., Barrett, R.T. & Systad, G.H. (2022). Population status, breeding biology and diet of Norwegian great cormorants. Ardea 109: 299-312.
Lundström, K. (2024). Rikstäckande inventering av häckande storskarv (Phalacrocorax carbo) i Sverige 2023 Sveriges lantbruksuniversitet, SLU
Nordén, M., Berger, U. & Engwall, M. (2013). High levels of perfluoroalkyl acids in eggs and embryo livers of great cormorant (Phalacrocorax carbo sinensis) and herring gull (Larus argentatus) from Lake Vänern, Sweden. Environmental Science and Pollution Research 20(11): 8021-8030. doi: 10.1007/s11356-013-1567-3
O’Hanlon, N.J., Bond, A.L., Masden, E.A., Lavers, J.L. & James, N.A. (2021). Measuring nest incorporation of anthropogenic debris by seabirds: An opportunistic approach increases geographic scope and reduces costs. Marine Pollution Bulletin 171: 112706. doi: 10.1016/j.marpolbul.2021.112706
Sterup, J. & Bregnballe, T. (2025). Danmarks ynglebestand av skarver i 2024. Technical Report from DCE – Danish Centre for Environment and Energy
Strøm, H., Gavrilo, M.V., Krasnov, Y.V. & Systad, G.H. (2009). Seabirds. In: Stiansen, J. E., Korneev, O., Titov, O., Arneberg, P. E., Filin, A., Hansen, J. R., Høines, Å. & Marasaev, S. C.-e. (Eds.) Joint Norwegian-Russian environmental status 2008. Report on the Barents Sea Ecosystem. Part II – Complete report. IMR/PINRO Joint Report Series, pp 67-73.
Van Eerden, M.R. & Gregersen, J. (1995). Long-term changes in hte Northwest European population of cormorants Phalacrocorax carbo sinensis. Ardea 83: 61-79.