Teist
Engelsk navn:
Black Guillemot
Vitenskapelig navn:
Cepphus grylle
Forfatter:
Sist oppdatert:
Beskrivelse
Teisten er den nest minste av alkefuglene i Atlanterhavet. Bare alkekongen er mindre. Med en kroppsvekt på rundt 400 gram er teisten nesten like stor som en lunde.
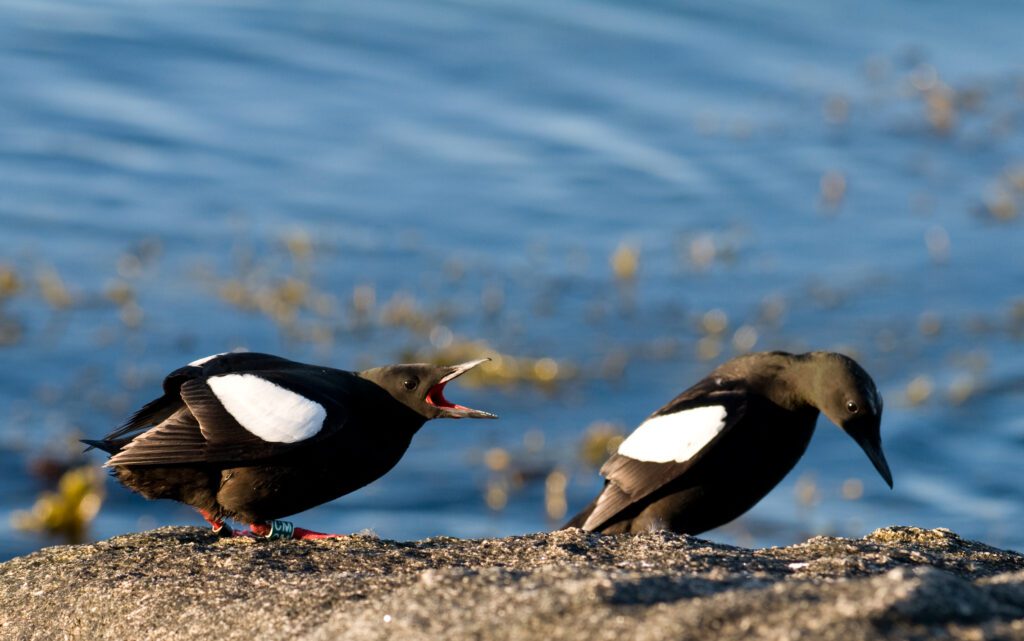
Voksne fugler i sommerdrakt kjennes lett på hvite vingespeil i en ellers helt svart fjærdrakt. Nebbet er også svart, men føttene og innsiden av gapet er dypt røde.
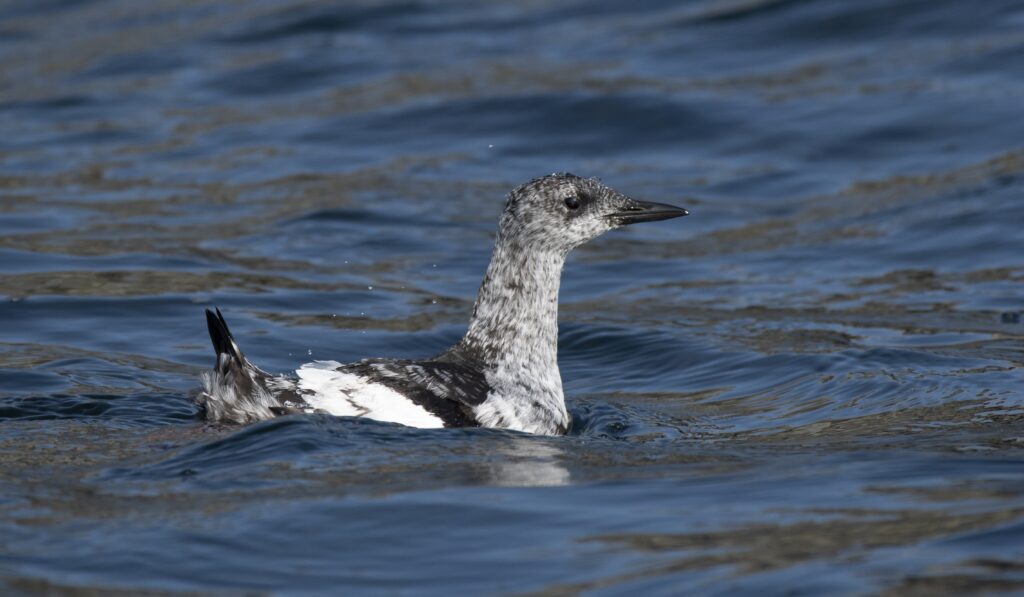
Kjønnene er jevnstore og kan ikke skilles på utseende. Med unntak av svarte vinge- og stjertfjær er vinterdrakten til de høyarktiske fuglene (underarten C. g. mandtii) nesten helt hvit, mens fuglene på fastlandet har hvit buk og en overside vatret i svart og hvitt.
Ungenes første fjærdrakt ligner vinterdrakten til de voksne. Om sommeren har ungfuglene (1-2 åringer) en brunere fjærdrakt med dårligere markerte vingespeil enn de voksne.
I hekkeområdet har de et fascinerende sosialt spill, både når de samler seg på land i fjæresonen, legger seg på en lang rekke på sjøen utenfor, eller setter seg parvis opp utenfor reirene. Den tynne, pipende lyden fra spillende teister er umiskjennelig, og spillet foregår nesten daglig gjennom hele hekkesesongen, oftest når det er høyvann.
Relevante lenker:
Rødlistestatus for teist
Teisten er regnet som livskraftig både på globalt og europeisk nivå (IUCN 2025; BirdLife International 2021). Det samme gjelder bestanden på Svalbard. I Norge er imidlertid arten rødlistet som nær truet, basert på en antatt tilbakegang på 15-30 % over tre generasjoner.
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Det sist publiserte estimatet for den europeiske bestanden er på 368 000 – 397 000 voksne fugler (BirdLife International 2021). Da ble imidlertid bestandstallene for de norske områdene ikke omregnet til individer, noe som ville ha endret resultatet til 423 000 – 452 000 voksne, tilsvarende omtrent 220 000 par. Dette er 37 % høyere enn gjennomsnittet av estimatet til Mitchell et al. (2004) som beregnet verdensbestanden til 260 000 – 410 000 par og at 48 % av disse (omkring 160 000 par) hekket i Europa i 2004.
Forskjellen speiler neppe reelle bestandsendringer, men skyldes mest justeringer av usikre bestandsestimater for flere områder. Dette gjelder særlig Grønland som har nær halvparten av den europeiske bestanden.
Ellers indikerer individtallene sammenstilt av BirdLife International (2021) at både Island og Færøyene har mer enn 5 000 par og De britiske øyer ca. 23 000 par, flest på øyene nordvest i Storbritannia. Den russiske delen av Barentshavet har trolig mellom 5 000 og 8 000 par, mens bestanden i Østersjøen teller ca. 45 000 par.
Nasjonalt
| Region/område | Estimert antall (par) | År | Referanse |
|---|---|---|---|
| Svalbard | 20 000 | 2015 | Anker-Nilssen et al. 2015 |
| Bjørnøya | <1 000 | 2015 | Anker-Nilssen et al. 2015 |
| Øvrige områder | 19 000 | 2015 | Anker-Nilssen et al. 2015 |
| Jan Mayen | <1 000 | 2015 | Anker-Nilssen et al. 2015 |
| Fastlandet | 28 455 | 2024 | SEAPOP 2024 |
| Barentshavet | 7 114 | 2024 | SEAPOP 2024 |
| Norskehavet | 12 023 | 2024 | SEAPOP 2024 |
| Nordsjøen | 9 318 | 2024 | SEAPOP 2024 |
| Norge totalt | <49 455 |
¹Teistens mørke utseende, spredte hekkemønster og kryptiske reirhabitat gjør det vanskelig å samle inn gode data for bestandsestimater. Tallene må derfor tolkes med forsiktighet (se konfidensintervallene), og forskjeller fra tidligere estimater kan foreløpig ikke tolkes som endringer i bestanden.
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 400 000–500 000 | Individer | Økende (langsiktig) | 2018 | Environment and Climate Change Canada 2019 |
| Danmark | 3 836 | Individer | Stabil (kortsiktig), Økende (langsiktig) | 2013 – 2018 | European Commission 2020 |
| England | 3 | Individer | 2015 – 2021 | Burnell et al. 2023 | |
| Finland | 9 556–23 154 | Individer | Stabil | 2013 – 2018 | European Commission 2020 |
| Færøyene | 3 500 | Par | 2002 | B. Olsen (pers. kom. sitert i Frederiksen 2010) | |
| Grønland | 20 000 | Par | 2007 | Frederiksen 2010 | |
| Island | 10 000–15 000 | Par | 1998 | Frederiksen 2010 | |
| Nord-Irland (UK) | 1 166 | Individer | 2015 – 2021 | Burnell et al. 2023 | |
| Republikken Irland | 4 119 | Individer | 2015 – 2021 | Burnell et al. 2023 | |
| Russland | 17 030–19 030 | Par | Strøm et al. 2009 | ||
| Skottland | 33 986 | Individer | 2015 – 2021 | Burnell et al. 2023 | |
| Sverige | 20 000–24 000 | Individer | Økende (kortsiktig), Synkende (langsiktig) | 2013 – 2018 | European Commission 2020 |
| Wales | 38 | Individer | 2015 – 2021 | Burnell et al. 2023 | |
| Globalt | 400 000–1 499 999 | Individer | 2012 | BirdLife International 2018 |
Hekkeutbredelse
Teisten har en sirkumpolar utbredelse og hekker i de fleste kystområdene langs norskekysten, på Svalbard og Jan Mayen.
I Europa hekker den fra sørspissen av Irland og videre nordøstover til Novaya Zemlya og Franz Josef Land (Lorentsen & Pokrovskaya 2000), men ikke i de sørligste delene av Nordsjøen.
Mange underarter er beskrevet på bakgrunn av forskjeller i fjærdrakt og størrelse, men flere av dem er dårlig definert fordi det er glidende overganger i disse egenskapene mellom områder (Butler et al. 2021).
Bestanden på norskekysten tilhører underarten C. g. arcticus som hekker på den europeiske fastlandskysten og på østkysten av Nord-Amerika, mens Svalbardbestanden er tilordnet C. g. mandtii som har en høyarktisk utbredelse.
En fersk populasjonsgenetisk studie av atlantiske bestander (Harkness et al. 2026) identifiserte tre genetisk ulike grupper, geografisk fordelt mellom Nordvest-Atlanteren, de arktiske områdene og Nordøst-Atlanteren. I den sistnevnte gruppen testet de imidlertid bare fugler fra Island og Østersjøen, som tidligere er beskrevet som egne underarter, mens fugler i Norge og på De britiske øyer var utelatt, til tross for at de tidligere er tilordnet samme underart som de i Nordvest-Atlanteren.
Kart: Teistens hekkeutbredelse i Norge.
Les mer…
Her oppgis våre siste estimater av hekkebestander for denne arten. Vi bruker statistiske utbredelsesmodeller i kombinasjon med tellinger til å beregne hvor fuglene hekker og hvor store hekkebestandene er.
Trekk- og vinterområder
Blant de norske sjøfuglene er teisten blant de som trekker aller kortest, men det er ikke kjent hvor fuglene fra Svalbard og Jan Mayen normalt oppholder seg om vinteren.
Av 113 gjenfunn av fugler ringmerket som reirunger på norskekysten, er kun 15 (13%) funnet mer enn 200 km fra merkeplassen om høsten eller vinteren i sitt første leveår (Bakken et al. 2003). Lengst dro en unge fra Hvaler (Østfold) som ble funnet 1 456 km unna på nordkysten av Bretagne (Frankrike). De fleste funn av fugler i andre eller tredje leveår er gjort i nærheten av koloniene.
I regi av SEAPOP er trekket til 26 voksne fugler fra Røst og Sklinna studert med lysloggere (Bråthen et al. 2026). Fuglene var aktive i kolonien gjennom hele hekkesesongen (mai-august). Etter dette trakk Røstfuglene i snitt 283 km unna, men individene fordelte seg langs hele kysten fra Vesterålen til Hordaland (maks. avstand 1 008 km).
Sklinnafuglene derimot, holdt seg i kort avstand fra kolonien gjennom hele vinteren (snitt 97 km, maks. 118 km). De første returnerte til hekkeplassen i mars og fuglene besøkte reirene stadig oftere gjennom april og mai. Studiet dokumenterte også at disse fuglene fortrinnsvis overvintret i skjærgårdsområder med mange øyer og rike forekomster av tareskog.
Et kort trekkmønster (snitt 157 km, maks. 494 km) er også dokumentert for to kolonier i Canada (Baak et al. 2021). Disse hadde ganske overlappende vinterutbredelse, men parallelle analyser av stabile isotoper i fjærene avdekket forskjeller mellom koloniene i trofisk nivå for hva de beitet på i området.
Arealbruk i ulike årstider basert på sporingsinformasjon fra individer i utvalgte lokaliteter. Velg hvilke årstider du vil se arealbruken for i øvre venstre hjørne.
Les mer…
Kartet viser kjernetetthetsfordelinger (kernel distributions) lagt over alle tilgjengelige datapunkter for valgt årstid. Disse er basert på individuelle sporingsdata fra hekkende fugler på lokaliteter angitt med sirkler (svart sirkel = informasjon tilgjengelig for høst, vinter og vår; hvit sirkel = informasjon tilgjengelig for sommer).
Økende fargeintensitet på polygonene representerer hhv 25 %, 50 % og 75 % sannsynlighetskonturer for disse funksjonene. Med andre ord viser kartene sannsynligheten for at fugler av denne arten befinner seg i området, basert på de tilgjengelige dataene.
For å zoome: Scroll med musa. For å panorere kartet: Hold inne venstre musknapp og dra. For å endre klodens vinkling: Hold inne høyre musknapp og dra.
Kilde for høst-, vinter- og vår-data er SEATRACK. Kilde for sommerdata er SEAPOP.
Bestandsutvikling
Datagrunnlaget for å vurdere bestandsendringer for teist er mange steder manglende eller sterkt begrenset. Dette gjelder også i norske farvann. Arten hekker mer spredt enn de andre alkefuglene, og på fastlandet hekker den alltid skjult under steiner eller i bergsprekker. Det er derfor svært tidkrevende å lokalisere alle reirene i en koloni.
Bestandene overvåkes lettere ved gjentatte tellinger av individer i koloniområdet i starten av hekkesesongen. Basert på slike tellinger rapporteres årlig utviklingen for kolonier på Røst og Sklinna, men det finnes også mindre fullstendige data fra andre områder, bl.a. på Anda og i Ytre Oslofjord.
Bestandsutviklingen er varierende, men jevnt over positiv over tid. Det siste tiåret (2014-2024) har bestanden på Røst økt med 4 % årlig mens den på Sklinna har økt med 1 % årlig (Layton-Matthews et al. 2025). Tellingene på Røst startet i 1981 og viser en gjennomsnittlig vekstrate på 1,1 % per år over 45 år, men avdekker også en kraftig nedgang i bestanden mellom 2006 og 2010 (Anker-Nilssen, upubl. data). Bestanden på Svalbard antas å være stabil (Stokke et al. 2021b).
Basert på rapporterte trender angir BirdLife International (2021) at teisten har økt i antall i Danmark, har ganske stabile bestander i Estland og Finland, men gått tilbake i Sverige, Storbritannia og på Island. De angir også at bestandsutviklingen i Irland, på Grønland og i Russland er ukjent, men i en nyere publikasjon dokumenterer Semashko et al. (2023) at bestandene i vestre deler av Kvitsjøen har variert betydelig siden 1960-tallet.
I Kandalaksha Bay økte bestanden kraftig til et historisk maksimum tidlig på 1980-tallet og en ny topp midt på 1990-tallet, før den falt til en tredel av dette nivået frem mot starten av 2000-tallet og har siden vært stabil eller svakt økende.
En kortere tidsserie fra Solovetskii-øyene viser også et toppnivå midt på 1990-tallet og et bunnivå tidlig på 2000-tallet med en gradvis økning etter dette. Begge steder var trendene synkrone med bestandene for flere arter måkefugler (Semashko et al. 2023).
På østkysten av Nord-Amerika er det ikke tilstrekkelig kunnskap til å konkludere om bestandstrender (Butler et al. 2021).
Estimerte årlige hekkebestander på nøkkellokalitetene. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Estimerte årlige hekkebestander. Superskript ts betyr at estimatet er et totalestimat for hele populasjonen innenfor valgte nøkkellokalitet, og i betyr estimat for størrelsen av en hekkekoloni/lokalitet som er del av en større bestand i valgte nøkkellokalitet. For noen arter og kolonier er tallene basert på en totaltelling, mens andre estimat er basert på telling av prøvefelt (deler av en bestand), hvorav total hekkbestand er beregnet vha. utvikling i prøvefelt og tidligere tall på total hekkebestand.
Demografi
Overlevelse
På Røst og Sklinna er midlere overlevelse for hekkende fugler henholdsvis 85 % og 82 % årlig, som er vesentlig lavere enn for artene som bare legger ett egg. Tilsvarende eller litt høyere overlevelse (86-87 %) er dokumentert for bestander på Island og i Shetland (Frederiksen & Petersen 1999; Gutowsky et al. 2026).
For bestander i Norge måles hekkesuksessen kun på Røst, hvor den i perioden 2000-2025 varierte fra 0,53 til 1,63 unger per par, med et årlig gjennomsnitt på 1,2. Det er for eksempel fem ganger så høyt som for lundene på Røst i samme periode, som har en gjennomsnittlig overlevelse på rundt 90 %.
Årlige overlevelsesrater med tilhørende konfidensintervall. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Overlevelsesrate og konfidensintervall er oppgitt for hvert år. Overlevelserate er basert på «fangst-gjenfangst»-data som blir innhentet på utvalgte nøkkellokaliteter hvert år: Et utvalg individuelle fugler blir merket med hver sin ring med unik kode, og basert på observasjoner av disse individene fra år til år kan en beregne gjennomsnittlig årlig overlevelse over samme tidsperiode.
Reproduksjon
Teisten legger oftest to egg i kullet, av og til bare ett og unntaksvis tre. Parringen foregår på land, som regel i vannkanten.
Teistene er som regel trofaste overfor partneren (Anker-Nilssen et al. 2010). I ni av ti tilfeller bruker de også den samme reirplassen år etter år (Frederiksen & Petersen 2000; Ewins 1989), men sannsynligheten for å flytte er vesentlig større etter mislykket hekking (Asbirk 1979).
Parbåndene varer gjerne livet ut, selv om skilsmisser forekommer (Anker-Nilssen, upubl. data).
Med flere egg i kullet har teisten en raskere livshistorie enn de andre atlantiske alkefuglene, som kun legger ett egg. Artens generasjonstid er beregnet til bare 9.2 år (Bird et al. 2020).
Beregnet årlig reproduksjon på nøkkellokalitetene. Enhet avhenger av art og lokalitet. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Hekkesuksess er definert på flere ulike måter avhengig av utvalgte arters livshistorie og overvåkingsmetodikk for de ulike nøkkellokalitetene. Alkefuglene (bortsett fra teist), i tillegg til havhest og havsule, legger kun ett egg pr par, mens de resterende har en kullstørrelse fra to og oppover. For de kolonihekkende artene, f.eks. lunde og havsule, er hekkesuksess målt på et utvalg av populasjonen, og de årlige estimatene har derfor et konfidensintervall som beskriver usikkerheten på estimatet. For noen arter/områder er hekkesuksess målt på samtlige individ i populasjonen, og det er derfor ikke noe usikkerhet knyttet til de årlige verdiene av hekkesuksess.
Næringsvalg
Sporing av hekkende fugler viser at teisten som regel søker næring i grunne områder nært land, men at områdebruken varierer både med dybde og forekomst av tareskog (Dehnhard et al. 2023). Næringssøket foregår oftest innenfor 10-15 km fra kolonien, selv om mer enn dobbelt så lange turer kan forekomme (Dehnhard et al. 2023).
Fugler fra samme koloni søker ofte næring i helt ulike områder og besøker gjerne de samme områdene gjentatte ganger (Owen et al. 2019), mest sannsynlig fordi lokal erfaring bidrar til høyere fangstsuksess i et så topografisk variert miljø med høy diversitet av mulige byttedyr. Ikke uventet har derfor arten en mer variert diett enn de andre alkefuglene (Anker-Nilssen 2010), som oftest beiter lenger til havs.
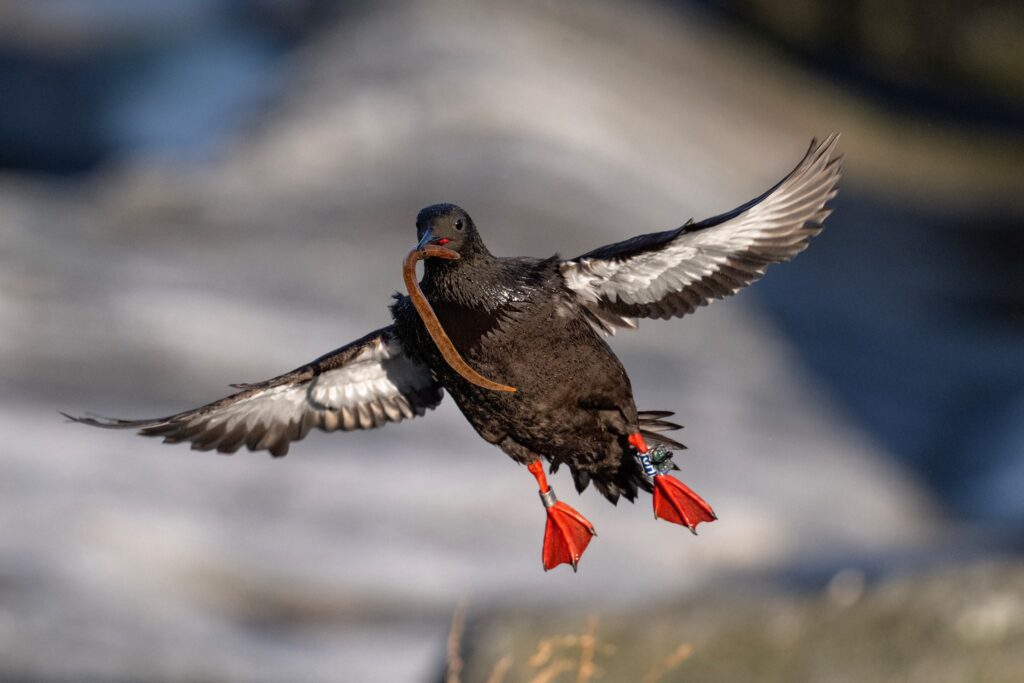
Som for de fleste sjøfuglene er teistens næringsvalg best studert gjennom hva den mater ungene med. Den bringer alltid bare ett bytte av gangen og tar både bunnlevende og pelagiske dyr, men sammensetningen av ungenes diett varierer betydelig mellom geografiske områder (Butler et al. 2020). Det er også store forskjeller mellom voksne fugler i hva de bringer til ungene, og individenes næringsvalg varierer også mellom år (Fayet & Anker-Nilssen i manus).
I flere områder er sil («tobis», Ammodytes sp.) et viktig byttedyr (f.eks. Ewins 1990) og forklarer hvorfor teisten heter tobisgrissla på svensk. Sil er nok viktigst i de grunneste delene av Nordsjøområdet, hvor habitat med sandbunn som disse artene foretrekker er mer utbredt enn lenger nord.
På Svalbard er teistens diett kun undersøkt for voksne fugler innsamlet sporadisk i iskantsonen og isfrie kystfarvann i mars-august (Mehlum & Gabrielsen 1993). Resultatene viser at fuglene fra isfrie kystfarvann (n=52) hadde en svært mangfoldig diett, bestående hovedsakelig av virvelløse dyr, men også flere arter fisk, blant annet polartorsk Boreogadus saida og ulker (Cottidae). Flerbørstemarken Nereis irrorata og bunnlevende tanglopper (Amphipoda, særlig Gammarellus homari) var hyppigst forekommende, men mange hadde også spist tifotkreps (Decapoda) og snegler.
Fuglene fra iskantsonen (n=21) hadde nesten utelukkende spist fisk, for det meste polartorsk, men også enkelte sei Pollachius virens og ålebrosmer Lycodes sp., mens kun 2-3 individer hadde spist andre byttedyr (hoppekreps (Copepoda) og tanglopper, bl.a. Gammarus wiIkitzkii).
På fastlandskysten mates teistungene som regel med fisk. I Norge er ungedietten best studert på Røst i Nordland (Barrett & Anker-Nilssen 1997, Fayet & Anker-Nilssen i manus) der i alt 41 arter byttedyr er påvist, hvorav 25 arter fisk. De hyppigst forekommende er tangsprell (34 %), fire arter ulker (Cottidae, 29 %), sei (18 %) og hornkvabbe (9 %). Virvelløse dyr utgjør bare 2,2 %, oftest krinakrabbe og eremittkreps.
På Sklinna i Trøndelag utgjorde ulker nær halvparten av ungedietten i perioden 2008-2021 (årlig snitt 49 %), etterfulgt av torskefisker (Gadidae, 27 %, mest sei) og tangsprell (17 %) (Dehnhard m.fl., upubl. data). Ingen andre arter utgjorde mer enn 2 %, og virvelløse dyr kun 1,2 %.
Hva hekkefuglene spiser selv er lite kjent, men det er rimelig å anta at de bringer de største byttedyrene til ungene. Det er derfor sannsynlig at dietten til de voksne også består av mindre byttedyr og et annet utvalg arter, slik det blant annet er vist for lomvi på Hornøya (Bugge et al. 2011).
Antakelsen støttes også av det store innslaget av små krepsdyr på Svalbard (Mehlum & Gabrielsen 1993) samt at 90 % av 62 teister tatt som bifangst i rognkjeksgarn på kysten av Troms og Finnmark i april-juni også hadde spist krepsdyr, i de fleste tilfeller små krinakrabber, mens under halvparten hadde spist fisk (Barrett et al. 2016).
Påvirkningsfaktorer og trusler
To trusler fremstår som spesielt viktige for teist i norske farvann: bifangst i garn og predasjon fra pattedyr. Bifangst rangeres også høyest i en analyse av trusler for arten til sjøs i Nord-Atlanteren (Lieske et al. 2019). Bifangst av teist forekommer regelmessig i garnfiskeriene langs norskekysten, spesielt i fisket etter rognkjeks (Fangel et al. 2015). Dette fisket foregår primært fra april til juli, dvs. både når teistene samler seg i hekkeområdene (april), legger egg (mai), ruger (juni) og mater unger (juli).
En mer helhetlig og sammenlignende analyse av bifangst i rognkjeksfisket over hele Nord-Atlanteren avdekket store forskjeller mellom ulike områder (Christensen-Dalsgaard et al. 2019). Mens beregningene indikerte at det norske fisket årlig tok omkring 60 teister, var det tilsvarende tallet mer enn 30 ganger høyere i det islandske fisket. Dette kan alene forklare den svært negative trenden i den islandske bestanden (−3.5 % p.a., Petersen et al. 2016), men bestandsovervåkingen foregår nesten utelukkende på Flatey i Breiðafjörður-området. Mens de islandske estimatene ble basert på observatørdata, var de norske basert på pålagt egenrapportering fra de aktive fiskerne til Fiskeridirektoratet (Christensen-Dalsgaard et al. 2019).
Predasjon av teist fra mink har lenge vært et kjent problem mange steder langs norskekysten, men minkens ekspansjon skjedde så tidlig at det er relativt lite kvantitativ kunnskap om effektene (Bevanger & Ålbu 1986, Bevanger & Henriksen 1995). Mangel på overlapp i utbredelsen til teist og mink på trøndelagskysten vitner likevel klart om problemets omfang (Follestad et al. 2005).
Basert på en gjennomgang av problematikken (DN 2011a) er det utarbeidet en nasjonal handlingsplan for å redusere minkbestanden (DN 2011b), og Statens Naturoppsyn har iverksatt tiltak mange steder langs kysten, fra Ytre Oslofjord til Øst-Finnmark. Utryddelse av mink på øyer der teist og andre sjøfugler har forsvunnet kan føre til at disse artene etablerer seg på nytt (Nordström et al. 2002). Selv om det er kjent at oter også kan ta teistunger og kanskje også voksne teist på reir (Johnston et al. 2019), har en reetablering av oter i mange områder bidratt til en tilbakegang i minkbestanden, bl.a. på vestlandskysten, hvor teistbestanden har vært liten over lang tid.
På Svalbard og Jan Mayen finnes det ikke mink og bifangst er trolig et minimalt problem. Reduksjon i isens utbredelse kan imidlertid tenkes å påvirke den arktiske underarten negativt, som vist for kolonien på Cooper Island på nordkysten av Alaska (Divoky et al. 2015; Divoky et al. 2016).
Selv lengst nord på Svalbard er det allerede langt til iskanten i hekkesesongen, og endringer i isens utbredelse vinterstid kan også tenkes å påvirke fuglenes kondisjon og overlevelse. Redusert isdekke medfører dessuten at stadig flere isbjørner må tilbringe sommeren på fast grunn, noe som kan øke predasjonstrykket på egg og unger av teist (Bourque et al. 2020). På Spitsbergen er en isbjørn også sett jakte og ta en voksen teist på sjøen (Stempniewicz et al. 2014).
Den mangfoldige dietten kan innebære at teisten er mer tilpasningsdyktig for endringer i byttedyrbestandene enn arter med et mer spesialisert næringsvalg. Modellering viser likevel at et varmere klima er en trussel som i betydelig grad kan forringe kvaliteten på artens viktigste hekkeområder i Østersjøen (Buchadas & Hof 2017).
Langs norskekysten utgjør kommersiell taretråling en mulig trussel for teist, siden arten søker næring i tareskogen gjennom hele året (Dehnhard et al. 2023; Bråthen et al. 2026). En pilotstudie har vist at beiteområdene til teist fra Sklinna i hekkeperioden overlapper delvis med områder som blir høstet (Dehnhard et al. 2024), men det er ikke kjent i detalj hvordan taretråling påvirker mattilbudet for teist og de andre sjøfuglartene som beiter i slike områder (Bustnes et al. 1997).
Skips- og båttrafikk i kystsonen er også en trussel for teist. Arten er sårbar for forstyrrelse av båter og unngår områder med mye båttrafikk (Ronconi & St. Clair 2002). Dette er en bekymring siden kystsonen blir stadig mer intensivt brukt av både flere og raskere fritidsbåter og av båter for kommersielle formål, f.eks. fiskeoppdrett, noe som kan redusere teistens tilgang til de beste områdene for næringssøk.
Av andre trusler er det vist at nivåene av bioakkumulerte miljøgifter som PCB i sjøfugl i iskantsonen nord i Barentshavet var lavere hos teist, polarlomvi og alkekonge enn hos krykkje (Borgå et al. 2005), men på samme nivå i teist og krykkjer i hekkeområdene i Kongsfjorden på Spitsbergen (Eckbo et al. 2019). Det er ikke gjort slike analyser av teist på fastlandskysten der fuglene muligens beiter på et høyere trofisk nivå i næringskjeden enn teistene på Svalbard.
Referanser
Anker-Nilssen, T. 2010. Key‐site monitoring in Røst in 2009. SEAPOP Short Report 12‐2010, 10 s. https://seapop.no/wp-content/uploads/2021/03/seapop-short-report-12-2010.pdf
Anker-Nilssen, T., Kleven, O., Aarvak, T., Lifjeld, J.T. 2010. Low or no frequency of extra-pair paternity in the Black Guillemot Cepphus grylle. Journal of Ornithology 151: 247-250.
Anker-Nilssen, T., Barrett, R.T., Lorentsen, S.-H., Strøm, H., Bustnes, J.O., Christensen-Dalsgaard, S., Descamps, S., Erikstad, K.E., Fauchald, P., Hanssen, S.A., Lorentzen, E., Moe, B., Reiertsen, T.K., Systad, G.H. 2015. SEAPOP. De ti første årene. Nøkkeldokument 2005-2014. SEAPOP. Norsk institutt for naturforskning, Norsk Polarinstitutt og Tromsø Museum – Universitetsmuseet. Trondheim, Tromsø. 58 s.
Asbirk, S. 1979. The adaptive significance of the reproductive pattern in the Black Guillemot, Cepphus grylle. Videnskabelige Meddelelser fra Dansk Naturhistorisk Forening i Kjøbenhavn 141: 29-80.
Baak, J.E., Leonard, M.L., Gjerdrum, C., Dodds, M.D., Ronconi, R.A. 2021. Non-breeding movements and foraging ecology of the Black Guillemot Cepphus grylle in Atlantic Canada. Marine Ornithology 49: 57-70.
Bakken, V., Runde, O., Tjørve, E. 2003. Norsk Ringmerkingsatlas. Vol. 1. Stavanger Museum, Stavanger.
Barrett, R.T., Anker-Nilssen, T. 1997. Egg-laying, chick growth and food of Black Guillemots Cepphus grylle in North Norway. Fauna norvegica Series C, Cinclus 20: 69-79.
Barrett, R.T., Lorentsen, S.-H., Anker-Nilssen, T. 2006. The status of seabirds breeding in mainland Norway. Atlantic Seabirds 8(3): 97-126.
Barrett, R.T., Christensen-Dalsgaard, S., Anker-Nilssen, T., Langset, M., Fangel, K. 2016. Diet of adult and immature North Norwegian Black Guillemots Cepphus grylle. Seabird 29: 1-14.
Bevanger, K., Ålbu, Ø. 1986. Mink Mustela vison i Norge. Økoforsk utredning 6, 73 s.
Bevanger, K., Henriksen, G. 1995. The distributional history and present status of American mink (Mustela vison) in Norway. Annales Zoologici Fennici 32: 11–14.
Bird, J.P., Martin, R., Akçakaya, H.R., Gilroy, J., Burfield, I.J., Garnett, S.T., Symes, A., Taylor, J., Şekercioğlu, Ç., Butchart, S.H.M. 2020. Generation lengths of the world’s birds and their implications for extinction risk. Conservation Biology 34: 1252-1261.
BirdLife International 2021. Cepphus grylle (Black guillemot). European Red List of Birds. Luxembourg: Publications Office of the European Union.
Borgå, K., Wolkers, H., Skaare, J.U., Hop, H., Muir, D.C.G., Gabrielsen, G.W. 2005. Bioaccumulation of PCBs in Arctic seabirds: influence of dietary exposure and congener biotransformation. Environmental Pollution 134: 397-409.
Bourque, J., Atwood, T.C., Divoky, G.J., Stewart, C., McKinney, M.A. 2020. Fatty acid-based diet estimates suggest ringed seal remain the main prey of southern Beaufort Sea polar bears despite recent use of onshore food resources. Ecology and Evolution 10: 2093-2103.
Bråthen, V.S., Dehnhard, N., Fayet, A.L., Christensen-Dalsgaard, S., Lorentsen, S.-H., Anker-Nilssen, T. 2026. Divergent migratory strategies of black guillemots from two colonies in the Norwegian Sea. Marine Biology 173(2): 22.
Buchadas, A.R.C., Hof, A.R. 2017. Future breeding and foraging sites of a southern edge population of the locally endangered Black Guillemot Cepphus grylle. Bird Study 64(3): 306-316.
Bugge, J., Barrett, R.T., Pedersen, T. 2011. Optimal foraging in chick-raising Common Guillemots (Uria aalge). Journal of Ornithology 152: 253-259.
Bustnes, J.O., Christie, H., & Lorentsen, S.-H. 1997. Sjøfugl, tareskog og taretråling: en kunnskapsstatus. NINA oppdragsmelding 472, 43 s.
Butler, R.G., Buckley, D.E., Nettleship, D.N., Boesman P.F.D., Garcia E. 2020. Black Guillemot (Cepphus grylle), version 1.0. I: Billerman, S.M. (red.) Birds of the World. Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.blkgui.01
Christensen-Dalsgaard, S., Anker-Nilssen, T., Crawford, R., Bond, A., Sigurðsson, G.M., Glemarec, G., Hansen, E.S., Kadin, M., Kindt-Larsen, L., Mallory, M., Merkel, F.R., Petersen, A., Provencher, J., Bærum, K.M. 2019. What’s the catch with lumpsuckers? A North Atlantic review of seabird bycatch in lumpsucker gillnet fisheries. Biological Conservation 240: 108278.
Dehnhard, N., Anker-Nilssen, T., Johnston, D., Masden, E.A., Lorentsen, S.-H., Christensen-Dalsgaard, S. 2023. Foraging behaviour of black guillemots at three Norwegian colonies during the breeding season. Marine Biology 170(7): 87.
Dehnhard, N., Mattisson, J., Christensen-Dalsgaard, S., Junker-Köhler, B., Bargmann, T., Kvalnes, T. 2024. Effects of brown seaweed harvesting on sea- and shorebirds in Norway. Assessment of existing knowledge, spatial overlap and attitudes of interest groups. NINA Report 2502, 88 s.
Divoky, G.J., Lukacs, P.M., Druckenmiller, M.L. 2015. Effects of recent decreases in arctic sea ice on an ice-associated marine bird. Progress in Oceanography 136: 151-161.
Divoky, G.J., Douglas, D.C., Stenhouse, I.J. 2016. Arctic sea ice a major determinant in Mandt’s black guillemot movement and distribution during non-breeding season. Biology Letters 12: 20160275.
DN (The Norwegian Directorate for Nature Management) 2011a. Invasive American Mink (Neovison vison): Status, ecology and control strategies. Scientific basis for action plan against American Mink in Norway. DN-utredning 6-2011, 28 s.
DN (Direktoratet for naturforvaltning) 2011b. Handlingsplan mot mink. DN-rapport 5-2011, 28 s.
Eckbo, N., Le Bohec, C., Planas-Bielsa, V., Warner, N.A., Schull, Q., Herzke, D., Zahn, S., Haarr, A., Gabrielsen, G.W., Borgå, K. 2019. Individual variability in contaminants and physiological status in a resident Arctic seabird species. Environmental Pollution 249: 191-199.
Ewins, P.J. 1989. The breeding biology of Black Guillemots Cepphus grylle in Shetland. Ibis 131: 507-520.
Ewins, P.J. 1990. The diet of black guillemots Cepphus grylle in Shetland. Holarctic Ecology 13: 90-97.
Fangel, K., Aas, Ø., Vølstad, J.H., Bærum, K.M., Christensen-Dalsgaard, S., Nedreaas, K., Overvik, M., Wold, L.C., Anker-Nilssen, T. 2015. Assessing incidental bycatch of seabirds in Norwegian coastal commercial fisheries: Empirical and methodological lessons. Global Ecology and Conservation 4: 127-136.
Fauchald, P., Anker-Nilssen, T., Barrett R.T., Bustnes, J.O., Bårdsen, B.-J., Christensen-Dalsgaard, S., Descamps, S., Engen, S., Erikstad, K.E., Hanssen, S.A., Lorentsen, S.-H., Moe, B., Reiertsen, T.K., Strøm, H., Systad, G.H. 2015. The status and trends of seabirds breeding in Norway and Svalbard. NINA Report 1151, 84 s.
Fayet, A., Anker-Nilssen, T. i manuskript. Intraspecific competition and sex affect individual dietary specialisation over a three-generation period in a coastal seabird.
Follestad, A., Heggberget, T.M., Hoem, S.A., Nygård, T., Reitan, O., Røv, N. 2005. Arealbruk på kysten påvirker dyrelivet. I: Heggberget, T.M., Jonsson, B. (red.) Landskapsøkologi: arealbruk og landskapsanalyse. NINAs strategiske instituttprogrammer 2001-2005. NINA Temahefte 32, 100 s.
Frederiksen, M., Petersen, A. 1999. Adult survival of the Black Guillemot in Iceland. The Condor 101: 589-597.
Frederiksen, M., Petersen, A. 2000. The importance of natal dispersal in a colonial seabird, the Black Guillemot Cepphus grylle. Ibis 142: 48-57.
Gutowsky, S.E., Mallory, M.L., Robertson, G.J., Calvert, A.M., Fifield, D.A., Thorstensen, S., Petersen, Æ. 2026. A half century of monitoring reveals contrasting survival responses of Icelandic seabirds to climate and fisheries pressures. Ibis (doi: 10.1111/ibi.70035)
Harkness, B.A.S., Colston-Nepali, L., Robertson, G.J., Provencher, J.F., Boccia, C.K., Friesen, V.L. 2026. Population Genomic Structure and Demographic History of Black Guillemots Breeding Across the North Atlantic. Ecology and Evolution 16: e73126
IUCN 2025. The IUCN Red List of Threatened Species. Version 2025-2. https://www.iucnredlist.org. Sjekket 11.3.2026.
Johnston, D.T., Furness, R.W., Robbins, A.M.C., Tyler, G.A., Masden, E.A. 2019. Camera traps reveal predators of breeding Black Guillemots Cepphus grylle. Seabird 32: 72-83.
Layton-Matthews, K., Høyvik Hilde, C.H., Setsaas, E. (red.) 2025. Sjøfugl i Norge 2024. Resultater fra SEAPOP-programmet. SEAPOP, Trondheim, Tromsø, 40 s.
Lieske, D.J., McFarlane Tranquilla, L., Ronconi, R., Abbott, S. 2019. Synthesizing expert opinion to assess the at-sea risks to seabirds in the western North Atlantic. Biological Conservation 233: 41-50.
Lorentsen, S.-H., Pokrovskaya, I.V. 2000. Black guillemot Cepphus grylle. I: Anker-Nilssen, T., Bakken, V., Strøm, H., Golovkin, A.N., Bianki, V.V. & Tatarinkova, I.P. (red.). The status of marine birds breeding in the Barents Sea region. Norsk Polarinstitutt Rapportserie 113, Tromsø, s. 24-26.
Mehlum, F., Gabrielsen, G.W. 1993. The diet of high-arctic seabirds in coastal and ice-covered, pelagic areas near the Svalbard archipelago. Polar Research 12(1): 1-20.
Mitchell, P.I. 2004. Black guillemot Cepphus grylle. I: Mitchell, P.I., Newton, S., Ratcliffe, N., Dunn, T.E. (red.) Seabird populations of Britain and Ireland. T. & A.D. Poyser, s. 101-114.
Nordström, M., Högmander, J., Laine, J., Nummelin, J., Laanetu, N., Korpimäki, E. 2002. Effects of feral mink removal on seabirds, waders and passerines on small islands in the Baltic Sea. Biological Conservation 109: 359-368.
Owen, E., Wakefield, E., Hollinrake, P., Leitch, A., Steel, L., Bolton, M. 2019. Breeding together, feeding apart: sympatrically breeding seabirds forage in individually distinct locations. Marine Ecology Progress Series 620: 173-183.
Petersen, A., Thorstensen, S., Brides, K., Frederiksen, M., 2016. Long-term study of black guillemots in Iceland. I: Anon (red.). Abstracts from 13th International Seabird Group Conference, Edinburgh, UK, 6-9 September 2016, s. 74.
Ronconi, R.A., Clair, C.C. 2002. Management options to reduce boat disturbance on foraging black guillemots (Cepphus grylle) in the Bay of Fundy. Biological Conservation 108(3): 265-271.
Semashko, V.Y., Semashko, E.V., Tertitski, G.M., Cherenkov, A.E., Shutova, E.V., Tolmacheva, E.L. 2023. Long-Term Population Dynamics of Seabirds Breeding in the Western Part of the White Sea. Biology Bulletin 50(7): 1464–1476.
Stempniewicz, L., Kidawa, D., Barcikowski, M., Iliszko, L. 2014. Unusual hunting and feeding behaviour of polar bears on Spitsbergen. Polar Record 50(2): 216-219.
Stokke, B.G., Dale, S., Jacobsen, K.-O., Lislevand, T., Solvang, R. og Strøm. H. (24.11.2021a). Fugler: Vurdering av teist Cepphus grylle for Norge. Rødlista for arter 2021. Artsdatabanken. https://lister.artsdatabanken.no/rodlisteforarter/2021/27693.
Stokke, B.G., Dale, S., Jacobsen, K.-O., Lislevand, T., Solvang, R. og Strøm. H. (24.11.2021b). Fugler: Vurdering av teist Cepphus grylle for Svalbard. Rødlista for arter 2021. Artsdatabanken. https://lister.artsdatabanken.no/rodlisteforarter/2021/31811.