Polarlomvi
Engelsk navn: Brünnich’s Guillemot
Vitenskapelig navn: Uria lomvia
Snarveier:
Beskrivelse
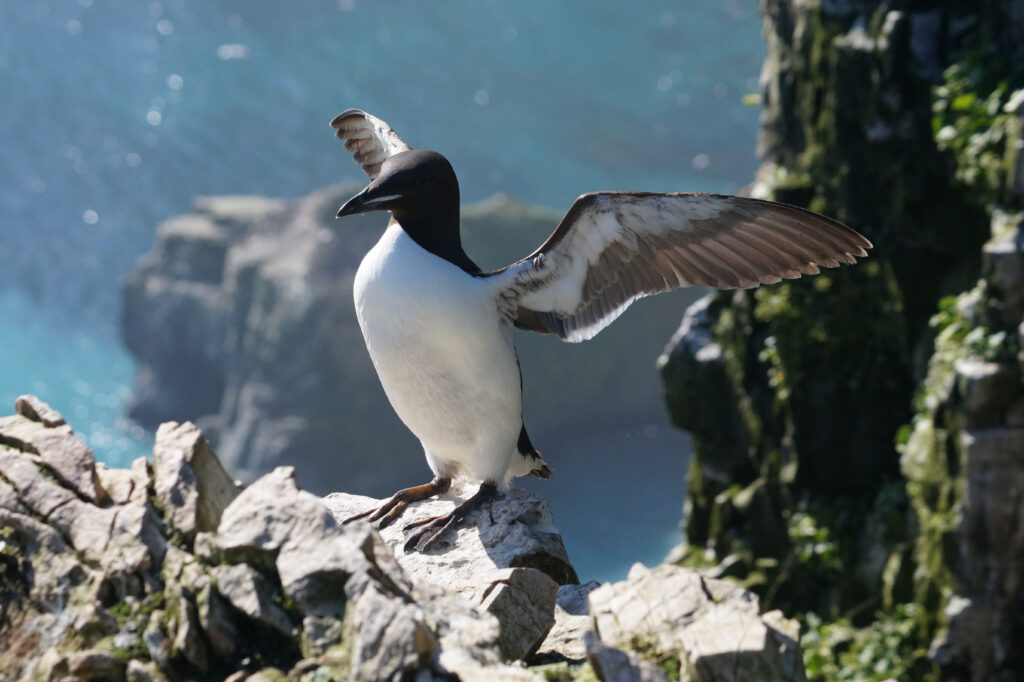
Polarlomvien er en alkefugl som blir 39–43 cm lang og veier 700–1200 g. Kjønnene er like av utseende. I sommerdrakt har polarlomvien svart hode, hals og overside, skarpt avgrenset mot den hvite undersiden. Øynene er svarte og beina gråsvarte.
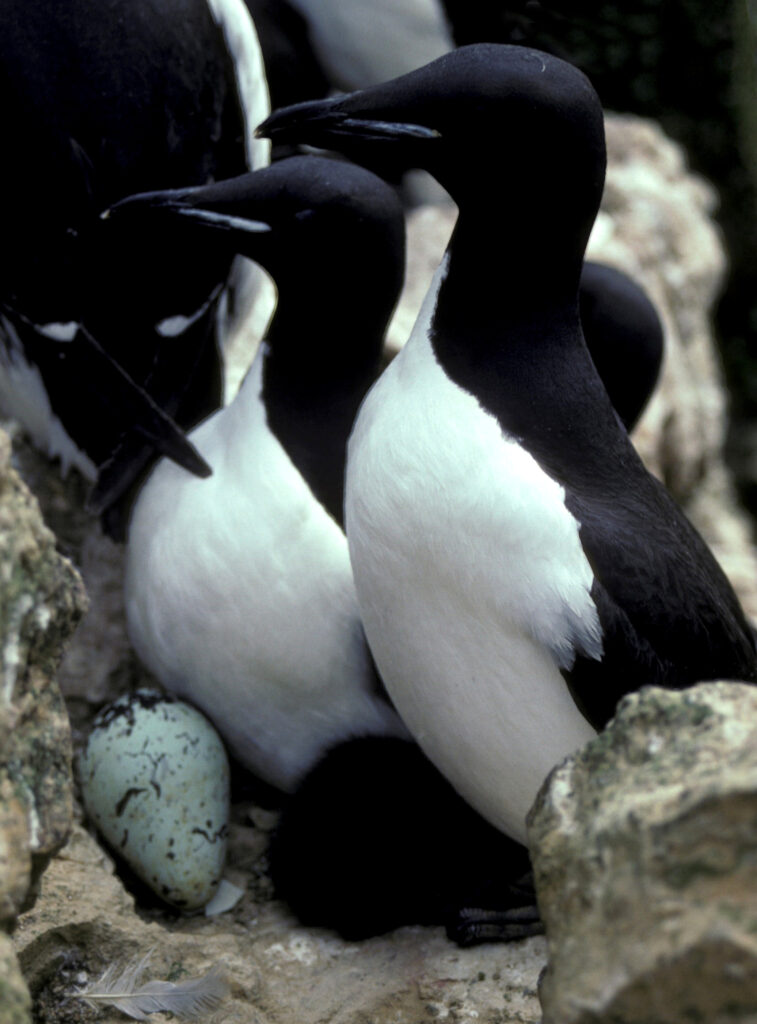
Polarlomvien mangler lomviens mørke tegninger på de hvite kroppssidene, og har et kortere og kraftigere nebb med en hvit eller blåhvit stripe langs overnebbets underkant. Polarlomvien er også mer kompakt enn lomvien, og i tilfeller hvor man observerer begge artene i godt lys, fremstår lomvien mer brun i fjærdrakten, mens polarlomvien er svart.
I vinterdrakt er strupen og nedre del av kinnet hvitt. Det hvite på kinnet går imidlertid ikke så langt opp mot øyet som hos lomvien. Ungfuglene likner de voksne polarlomviene i vinterdrakt, men nebbet er kortere og spinklere.
Relevante lenker:
Rødlistestatus for polarlomvi
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Nasjonalt
| Region/område | Estimert antall (par) | Metode | År | Referanse |
|---|---|---|---|---|
| Barentshavet | 110 | Trend-based | 2024 | SEAPOP 2024 |
| Bjørnøya | 78 717 | Trend-based | 2024 | SEAPOP 2024 |
| Fastlandet | 110 | |||
| Jan Mayen | 34 231 | Trend-based | 2024 | SEAPOP 2024 |
| Nordsjøen | 0 | 2014 | Anker-Nilssen et al. 2015 | |
| Norge totalt | 684 884 | |||
| Norskehavet | 0 | 2014 | Anker-Nilssen et al. 2015 | |
| Svalbard | 650 543 | |||
| Øvrige områder | 571 826 | Trend-based | 2024 | SEAPOP 2024 |
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 3 300 000 | Individer | Arktisk populasjon: Økende (1970 – 2010)Atlantisk populasjon: Stabil/ Synkende (1978 – 2012) | Environment and Climate Change Canada and Birds Canada 2024 | |
| Danmark | |||||
| England | 0 | Burnell et al. 2023 | |||
| Finland | 1 | Individ | 2008 | BirdLife Suomi 2026 | |
| Færøyene | 0 | Jóhannis Danielsen pers. kom. | |||
| Grønland | 940 000 | Individer | Birdlife International 2015; Frederiksen et al. 2016 | ||
| Island | 326 843 | Par | Synkende | 2006 – 2008 | Garðarsson et al. 2019 |
| Nord-Irland (UK) | 0 | Burnell et al. 2023 | |||
| Republikken Irland | 0 | Burnell et al. 2023 | |||
| Russland | 27 050 – 526 800 | Par | Strøm et al. 2009 | ||
| Skottland | 0 | Burnell et al. 2023 | |||
| Sverige | |||||
| Wales | 0 | Burnell et al. 2023 | |||
| Globalt | >22 000 000 | Individer | Økende | BirdLife International (2018) (trend only); del Hoyo et al. 1996 |
Hekkeutbredelse
På den nordlige halvkule er polarlomvien en av de mest tallrike sjøfuglene. Den har en sirkumpolar utbredelse i arktiske og subarktiske områder mellom 46˚ N og 82˚ N. I det nordøstlige Atlanterhavet hekker den på Grønland, Island, Jan Mayen, Svalbard, Frans Josef Land (Russland) og Novaja Semlja (Russland).
Arten forekommer også fåtallig langs kysten av Finnmark og Murmanskkysten. Fire underarter er beskrevet. Svalbardbestanden, og øvrige populasjoner i det nordlige Atlanterhavet, tilhører underarten U. l. lomvia (Strøm og Descamps 2013).
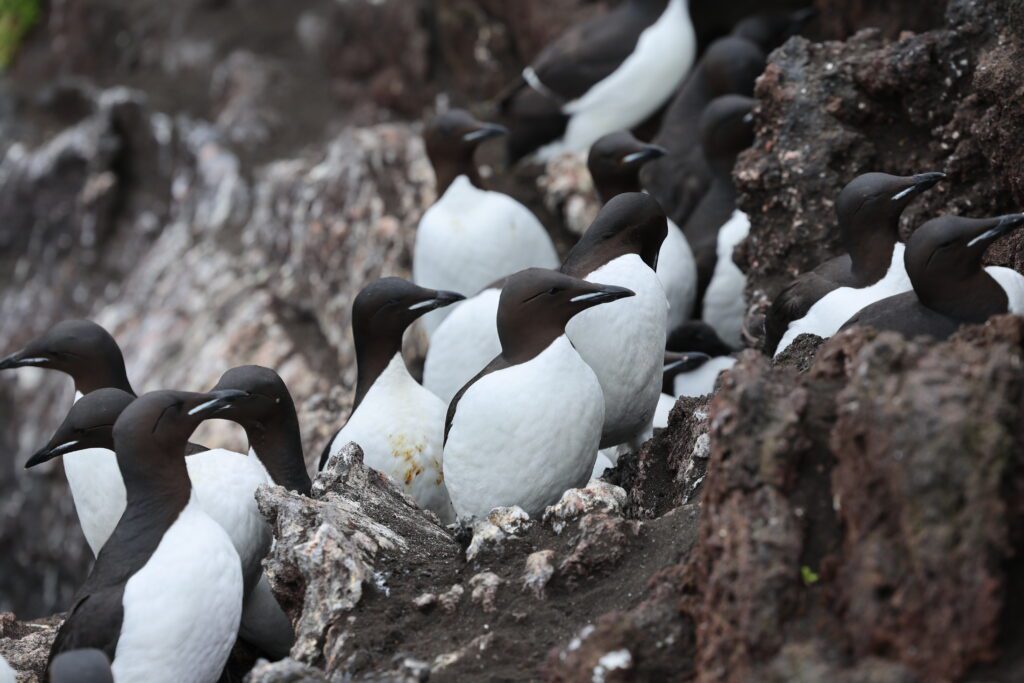
Polarlomvien er en av de vanligste sjøfuglene på Svalbard, og den hekker i kolonier over hele øygruppen. Til sammen er det registrert 142 kolonier. De største koloniene (flere på over 100 000 par) ligger på sørøstkysten av Spitsbergen (Koval’skijfjella og Stellingfjellet), på Hopen og på Bjørnøya. Mer enn 80 % av Svalbardbestanden hekker innenfor dette trianglet.
På Jan Mayen er polarlomvi også en av de vanligste og mest tallrike hekkeartene. Det finnes også noen få små kolonier i Nord-Norge (bl.a. Hornøya og Hjelmsøya i Finnmark), men disse omfatter bare noen få individer (Strøm og Descamps 2013).
Trekk- og vinterområder
Polarlomvi som hekker på vestkysten av Spitsbergen og på Jan Mayen overvintrer sørvest av Grønland, farvannene utenfor Newfoundland og Labrador (Canada) og mellom Island og Grønland. Fuglene på Bjørnøya overvintrer hovedsakelig rundt Island (Frederiksen et al. 2016).
Polarlomvi som hekker nordøst på Spitsbergen overvintrer i Barentshavet, mens overvintringsområdene for fugler som hekker sørøst på Spitsbergen, Edgeøya og Hopen er ukjent (Descamps et al. 2025).
Polarlomviene forlater koloniene når ungene hopper mot slutten av juli (vest-Spitsbergen og Bjørnøya) og i august (øst-Spitsbergen). De returnerer til koloniene igjen i april og mai.
Bestandsutvikling
Etter ca. 1997 er det dokumentert en nedgang i hekkebestanden i alle de overvåkede koloniene vest på Spitsbergen og Bjørnøya (Descamps et al. 2013, Descamps et al. 2025). Bestanden på Jan Mayen er også i tilbakegang, men starten på denne nedgangen er ukjent ettersom bestanden bare har blitt overvåket siden 2011.
Årsaken til nedgangen i polarlomvibestanden kan være koblet til oseanografiske endringer i artens overvintringsområder (Descamps et al. 2013, Fluhr et al. 2017). Lignende endringer er observert for enkelte polarlomvikolonier i den russiske delen av Barentshavet (Krasnov og Ezhov 2023).
Bestandene som hekker i nordøst på Svalbard klarer seg imidlertid bedre, og trenden har vært positiv de siste ti årene. Årsaken er trolig knyttet til ulik trekkatferd og forskjellige overvintringsområder.
Fugler fra denne delen av Svalbard oppholder seg i den nordlige delen av Barentshavet om vinteren, og forholdene der kan fortsatt være gunstige med tilstrekkelige matressurser (Descamps et al. 2025). Havområdene her varmes imidlertid raskt opp som følge av klimaendringer, og det er uvisst om den nordlige delen av Barentshavet vil forbli et godt overvintringsområde for polarlomvi i årene som kommer.
Samlet sett er majoriteten av den norske polarlomvibestanden i rask tilbakegang. Noen kolonier viser imidlertid en annen utvikling, og for å kunne vurdere statusen til den samlede norske bestanden på en god måte, er det nødvendig å få kartlagt bestandstrendene i koloniene sørøst på Svalbard inkludert Hopen.
Demografi
Overlevelse
Årlig overlevelse hos voksne polarlomvier er generelt høy, rundt 90 % (Frederiksen et al. 2021, Descamps et al. 2025), men kan også være betydelig lavere når forholdene til havs forverres (Fluhr et al. 2017). Høyeste kjente levealder for en reproduserende polarlomvi er minst 38 år. Dette er en fugl merket på Bjørnøya.
Reproduksjon
Arten inntar hekkehyllene når den ankommer i april–mai, men eggleggingen starter normalt i slutten av mai eller begynnelsen av juni. Tidspunktet for egglegging er relativt synkront i kolonien, slik at klekkingen og tidspunktet da ungene skal forlate kolonien blir tilsvarende synkronisert. Polarlomvien legger kun ett egg. Rugetiden er ca. 32 døgn, og begge kjønn deltar i rugingen.
Polarlomviungene hopper ned fra hyllene før de er flygedyktige i en alder av ca. 21 døgn (Strøm og Descamps 2013). Ungene følges ut på sjøen av en av foreldrene, vanligvis hannen. Foreldrene og ungene svømmer bort fra kolonien mot gode næringsområder (Merkel og Strøm 2024) og senere overvintringsområdene. Ungene blir trolig selvstendige fire til åtte uker etter at de forlot reirhylla. Polarlomvien blir kjønnsmoden etter tre til fem år.
Næringsvalg
Polarlomviens diett består hovedsakelig av fisk og krepsdyr (Mehlum og Gabrielsen 1993a, Mehlum og Gabrielsen 1993b, Stempniewicz et al. 2021). Vanligvis hentes næringen på dyp ned mot 50 meter, men dykk på mer enn 100 meter, av og til 200 meter, forekommer.
På Spitsbergen er polartorsk, ulike arter av langebarn og lodde viktige byttedyr. På Bjørnøya er lodde det viktigste byttedyret. Ungene fôres hovedsakelig med fisk (Strøm og Descamps 2013).
Næringsvalget i perioden utenfor hekkesesongen er dårlig kjent. Det er variasjon i dietten mellom år (både i og utenfor hekkesesongen), med konsekvenser for hekkesuksessen (Hovinen et al. 2019).
Påvirkningsfaktorer og trusler
En av de viktigste truslene mot polarlomvi er trolig klimaendringer og oppvarmingen av overvintringsområdene, som sannsynligvis påvirker mattilgangen negativt (Descamps et al. 2013, Fluhr et al. 2017, Layton-Matthews et al. 2025). De raske endringene i det marine miljøet rundt Svalbard (som tap av havis) kan også ha negative effekter på polarlomvibestandene, men så langt tyder tilgjengelig kunnskap på at disse endringene ikke er de viktigste driverne bak bestandsnedgangen (Ramírez et al. 2017, Descamps og Ramírez 2021, Sauser et al. 2023, 2024).
Et betydelig antall ungfugler fra Svalbard blir skutt hver vinter ved Grønland og Newfoundland (Frederiksen et al. 2019). Denne jakten kan bidra til nedgangen hos polarlomvi på Svalbard, men kan ikke alene forklare nedgangen og er ikke regnet som den viktigste årsaken.
Ulike typer forurensning, som kvikksølv (Cruz-Flores et al. 2023, Albert et al. 2024, Lundgren et al. 2024), PCB (Baert et al. 2013) eller flammehemmere (Hallanger et al. 2015) er påvist hos polarlomvi. Disse miljøgiftene finnes imidlertid vanligvis i relativt lave konsentrasjoner og vil sannsynligvis ikke ha vesentlig innvirkning på fuglenes overlevelse eller reproduksjon.
Fjellreven og polarmåker er de viktigste predatorene på egg og unger hos polarlomvien, og de tar også voksne fugler. Effekten av predasjon på polarlomvibestandenes dynamikk er imidlertid fortsatt ukjent.
Referanser
Albert, C., B. Moe, H. Strøm, D. Grémillet, M. Brault-Favrou, A. Tarroux, S. Descamps, V. S. Bråthen, B. Merkel, og J. Åström. 2024. Seabirds reveal mercury distribution across the North Atlantic. Proceedings of the National Academy of Sciences 121:e2315513121.
Baert, J., C. Janssen, K. Borga, og F. De Laender. 2013. Migration and opportunistic feeding increase PCB accumulation in Arctic seabirds. Environmental science & technology 47:11793-11801.
Cruz-Flores, M., J. Lemaire, M. Brault-Favrou, S. Christensen-Dalsgaard, C. Churlaud, S. Descamps, K. Elliott, K. E. Erikstad, A. Ezhov, og M. Gavrilo. 2023. Spatial distribution of selenium-mercury in Arctic seabirds. Environmental Pollution 343:123110.
Descamps, S., B. Merkel, og H. Strøm. 2025. Local variations in population trends and migration strategies of Brünnich’s guillemots on Svalbard. Marine Ecology Progress Series 765:101-114.
Descamps, S., og F. Ramírez. 2021. Species and spatial variation in the effects of sea ice on Arctic seabird populations. Diversity and Distributions 27:2204-2217.
Descamps, S., H. Strøm, og H. Steen. 2013. Decline of an arctic top predator: synchrony in colony size fluctuations, risk of extinction and the subpolar gyre. Oecologia 173:1271-1282.
Fluhr, J., H. Strøm, R. Pradel, O. Duriez, G. Beaugrand, og S. Descamps. 2017. Weakening of the subpolar gyre as a key driver of North Atlantic seabird demography: a case study with Brünnich’s guillemots in Svalbard. Marine Ecology Progress Series 563:1-11.
Frederiksen, M., S. Descamps, K. H. Elliott, A. J. Gaston, N. P. Huffeldt, Y. Kolbeinsson, J. F. Linnebjerg, E. Lorentzen, F. R. Merkel, og H. Strøm. 2021. Spatial variation in vital rates and population growth of thick-billed murres in the Atlantic Arctic. Marine Ecology Progress Series 672:1-13.
Frederiksen, M., S. Descamps, K. E. Erikstad, A. J. Gaston, H. G. Gilchrist, D. Grémillet, K. L. Johansen, Y. Kolbeinsson, J. F. Linnebjerg, og M. L. Mallory. 2016. Migration and wintering of a declining seabird, the thick-billed murre Uria lomvia, on an ocean basin scale: Conservation implications. Biological Conservation 200:26-35.
Frederiksen, M., J. F. Linnebjerg, F. R. Merkel, S. I. Wilhelm, og G. J. Robertson. 2019. Quantifying the relative impact of hunting and oiling on Brünnich’s guillemots in the North-west Atlantic. Polar research 38:3378.
Hallanger, I. G., K. Sagerup, A. Evenset, K. M. Kovacs, P. Leonards, E. Fuglei, H. Routti, J. Aars, H. Strøm, og C. Lydersen. 2015. Organophosphorous flame retardants in biota from Svalbard, Norway. Marine Pollution Bulletin 101:442-447.
Hovinen, J. E. H., A. Tarroux, F. Ramírez, M. Forero, og S. Descamps. 2019. Relationships between isotopic ratios, body condition and breeding success in a High Arctic seabird community. Marine Ecology Progress Series 613:183-195.
Krasnov, Y. V., og A. Ezhov. 2023. Destruction of Guillemot Colonies in the Southern Barents Sea and the Factors That Determine It. Biology Bulletin 50:2286-2293.
Layton-Matthews, K., C. E. Regan, M. Ballesteros, K. Hodges, S. Descamps, T. Anker-Nilssen, S. Benjaminsen, F. Daunt, R. T. Barrett, og L. Buckingham. 2025. Demographic responses of North Atlantic seabirds to seasonal ocean warming. Proceedings of the National Academy of Sciences of the United States of America.
Lundgren, S. S., N. A. Abbasi, C. A. Waugh, M. M. Lee, T. M. Ciesielski, G. W. Gabrielsen, S. Descamps, og V. L. Jaspers. 2024. Metals and other trace elements in plasma and feathers of seabirds breeding in Svalbard. Science of the Total Environment 952:175895.
Mehlum, F., og G. Gabrielsen. 1993a. The diet of high‐arctic seabirds in coastal and ice‐covered, pelagic areas near the Svalbard archipelago. Polar research 12:1-20.
Mehlum, F., og G. W. Gabrielsen. 1993b. The diet of high-Arctic seabirds in coastal and ice-covered, pelagic areas near the Svalbard Archipelago. Polar research 12:1-20.
Merkel, B., og H. Strøm. 2024. Post‐colony swimming migration in the genus Uria. Journal of Avian Biology 2024:e03153.
Ramírez, F., A. Tarroux, J. Hovinen, J. Navarro, I. Afán, M. G. Forero, og S. Descamps. 2017. Sea ice phenology and primary productivity pulses shape breeding success in Arctic seabirds. Scientific Reports 7:4500.
Sauser, C., F. Angelier, P. Blevin, O. Chastel, W. Jouanneau, A. Kato, B. Moe, F. Ramírez, S. Tartu, og S. Descamps. 2023. Demographic responses of Arctic seabirds to spring sea-ice variations. Frontiers in Ecology and Evolution 11:222.
Sauser, C., P. Blevin, O. Chastel, G. W. Gabrielsen, S. A. Hanssen, E. Lorentzen, B. Moe, S. Moreau, K. Sagerup, og S. Descamps. 2024. Ice type matters: Impacts of landfast and drift ice on body condition in a high Arctic seabird community. Frontiers in Marine Science 11:1326658.
Stempniewicz, L., M. Goc, M. Głuchowska, D. Kidawa, og J. M. Węsławski. 2021. Abundance, habitat use and food consumption of seabirds in the high-Arctic fjord ecosystem. Polar Biology 44:739-750.
Stokke, B. G., S. Dale, K.-O. Jacobsen, T. Lislevand, R. Solvang, og H. Strøm. 2021. Fugler: Vurdering av polarlomvi Uria lomvia for Norge. Rødlista for arter 2021. Artsdatabanken. https://lister.artsdatabanken.no/rodlisteforarter/2021/28902.
Strøm, H., og S. Descamps. 2013. Polarlomvi (Uria lomvia). https://npolar.no/arter/polarlomvi/.