Toppskarv
Engelsk navn: European Shag
Vitenskapelig navn: Gulosus aristotelis
Snarveier:
Beskrivelse
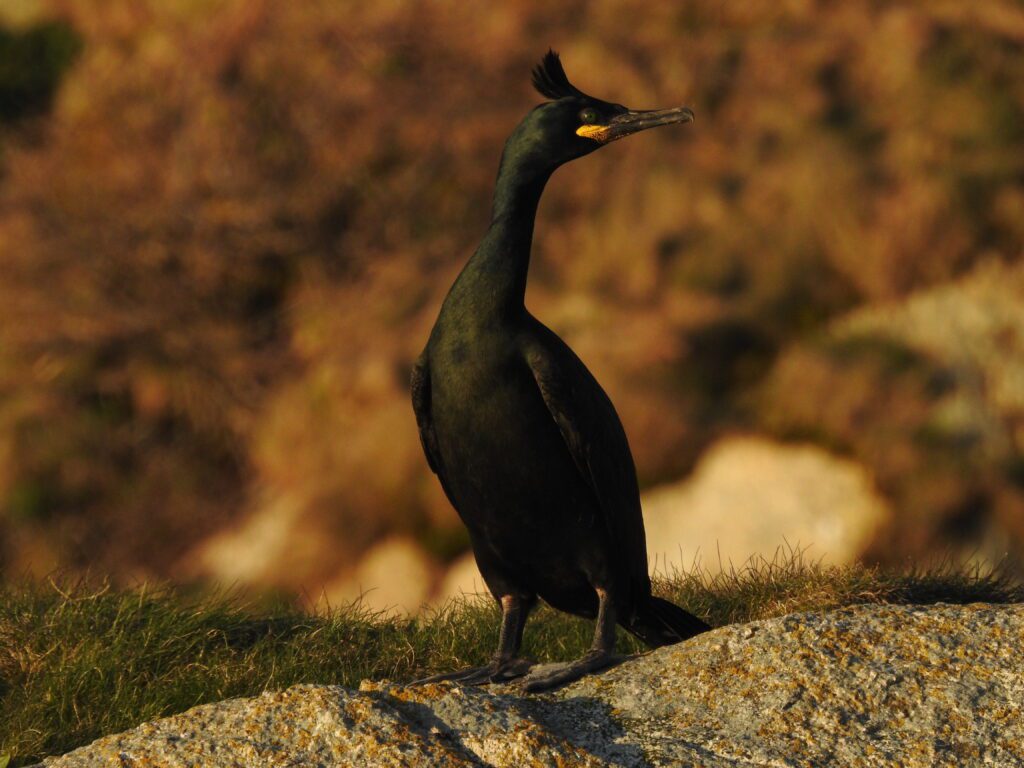
Toppskarv er en mellomstor sjøfugl som måler 65-80 cm i lengde og veier mellom 1500 og 2250 gram. Den har en svart fjærdrakt med metallisk grønn glans, svart nebb med lysende gul basis og svarte føtter. Kjønnene er like, men hannene er litt større enn hunnene. I en kort periode om våren, ved starten av hekkeperioden, har begge kjønnene en karakteristisk fjærtopp på hodet, som har gitt toppskarven navn sin.
Unge toppskarver har en brunfarget fjærdrakt uten grønn glans. Toppskarven er mindre i størrelsen enn dens nære slektning storskarv, har en forholdsvis tynnere hals samt mindre hode og nebb.
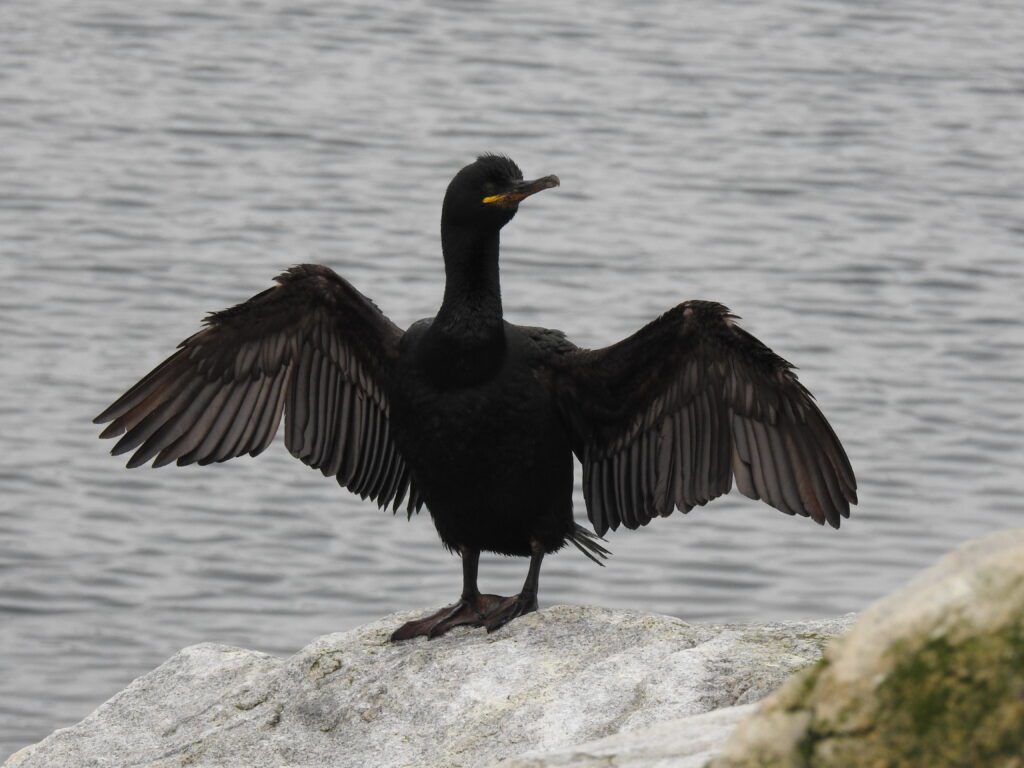
Toppskarvens fjærdrakt er ikke vanntett, og de er derfor avhengig av å tørke fjærene etter at de har dykket etter fisk, og man ser de da ofte med utslåtte vinger.
Alle toppskarv som hekker i Norge tilhører nominatformen Gulosus aristotelis aristotelis, mens det også finnes to andre underarter: G. a. desmarestii som hekker langs kysten av Middelhavest og Svartehavet og G. a. riggenbachi som hekker fra Marokko og sørover. Av de tre underartene er nominatformen størst, og G.a. riggenbachi minst i størrelsen, mens G.a. riggenbachi har en lengre nebb enn G.a. desmarestii. Tidligere ble toppskarv kategorisert i samme slekt som storskarv, og oppkalt Phalacrocorax aristotelis, men basert på en genetisk studie (Kennedy & Spencer 2014) ble toppskarv etter hvert plassert i sin egen slekt, Gulosus.
Relevante lenker:
Rødlistestatus for toppskarv
Toppskarv i Norge har rødlistestatus som livskraftig (Stokke et al. 2021). Siden ca. 25% del av den globale toppskarvbestand hekker i Norge blir toppskarv ansett som norsk ansvarsart.
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Hekkebestanden av toppskarv langs den norske fastlandskysten ble anslått til omtrent 28 000 par i 2013 (Fauchald et al. 2015). Arten hekker ikke på Jan Mayen og Svalbard.
Toppskarv etablerte seg som hekkefugl langs den Svenske vestkysten i 2004 og bestanden har vokst kraftig til nesten 1000 hekkepar i 2019, fordelt på 14 kolonier (Åhlund & Järås 2020). Strøm et al. (2009) rapporterte om ca. 350-400 par i Russland. På Island hekket det rundt 3800 par i 2017 (Icelandic Institute of Natural History 2023), og på Færøyene 1500 par i 2002 (Frederiksen 2010).
Bestanden av toppskarv i Storbritannia og Irland ble nylig anslått til å være på henholdsvis ca. 21 000 og 5000 par (Burnell et al. 2023). Hekkebestanden i Frankrike teller mellom 6000 og 7000 par (Grémillet et al. 2020).
Bestandsstørrelsen til nominatformen Gulosus aristotelis aristotelis teller ca. 68 000 hekkende par, mens den europeiske bestanden, som også inkluderer underarten G. a. desmarestii, estimeres til 76 300-78 500 par (BirdLife International 2018). Den globale bestanden av toppskarv, som inkluderer alle de tre underartene, ble i 2012 anslått til å være mellom 230 000 og 240 000 individer (BirdLife International 2018).
Nasjonalt
| Region/område | Estimert antall (par) | Metode | År | Referanse |
|---|---|---|---|---|
| Barentshavet | 1 788 | Trend-based | 2024 | SEAPOP 2024 |
| Bjørnøya | 0 | 2014 | Anker-Nilssen et al. 2015 | |
| Fastlandet | 14 302 | |||
| Jan Mayen | 0 | 2014 | Anker-Nilssen et al. 2015 | |
| Nordsjøen | 7 107 | Trend-based | 2024 | SEAPOP 2024 |
| Norge totalt | 14 302 | |||
| Norskehavet | 5 407 | Trend-based | 2024 | SEAPOP 2024 |
| Svalbard | 0 | |||
| Øvrige områder | 0 | 2014 | Anker-Nilssen et al. 2015 |
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | |||||
| Danmark | |||||
| England | 2 492 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Finland | |||||
| Frankrike | 6 000 – 7 000 | Par | Grémillet et al. 2020 | ||
| Færøyene | 1 500 | Par | Økende (kortsiktig) | 2002 | B. Olsen (pers.comm., as cited in Frederiksen 2010) |
| Grønland | |||||
| Island | 3 800 | Par | Synkende (kortsiktig) | 2017 | Icelandic Institute of Natural History 2023 |
| Nord-Irland (UK) | 278 | Par | 2015 – 2021 | Burnell et al. 2023 | |
| Republikken Irland | 4 748 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Russland | 350 – 400 | Par | Strøm et al. 2009 | ||
| Skottland | 16 788 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Sverige | 1 000 | Par | Økende | 2019 | Åhlund & Järås 2020 |
| Wales | 651 | AON | 2015 – 2021 | Burnell et al. 2023 | |
| Globalt | 230 000 – 240 000 | Individer | Synkende | 2012 | Wetlands International (2015, sitert i BirdLife international, 2018) |
Hekkeutbredelse
Toppskarv hekker i Vest-Europa samt Island og i Nord-Afrika, samt i kystregionen rundt Middelhavet og Svartehavet, men mangler som hekkefugl i østlige deler av Østersjøen og Nordsjøen. Underarten Gulosus aristotelis aristotelis hekker langs Atlanterhavkysten fra Kola-halvøya i Russland til Frankrike i sør.
I Spania, Portugal, i Middelhavet og Svartehavet hekker underarten Gulosus aristotelis desmarestii, mens underarten Gulosus aristotelis riggenbachi hekker fra Marokko og sørover til Vest-Sahara.
Trekk- og vinterområder
Toppskarv har en kystnær utbredelse året rundt. Arten beskrives best som «delvis trekkende art», dvs. at noen individer oppholder seg i området rundt hekkekolonien året rundt, mens andre trekker lengre om vinteren. Hvor langt fuglene trekker varierer også mellom koloniene.
Sporingsdata fra SEATRACK (Moe et al. 2021) viser at noen av toppskarvene som hekker på Hornøya i Finnmark trekker østover mot Kvitsjøen, noen er stasjonære rundt Hornøya, mens andre trekker vestover til Troms og Nordland.
Toppskarv fra Røst, derimot, forblir enten rundt Røst eller trekker sørover til Trøndelag. Toppskarv fra Sklinna er relativt stasjonære og forblir i Trøndelag, mens de fra Jarstein i Rogaland trekker nordover mot kysten av Vestlandet og Møre eller til Skagerrak.
Det virker som mattilgang om vinteren er det som bestemmer om toppskarv trekker bort fra kolonien og i hvilken retning (Moe et al. 2021).
Trekkadferd og overvintringsområder har også blitt studert nøye på østkysten av Skottland, hvor mange fugler er merket med fargeringer. Studier derfra viste høyere dødelighet blant de individene som forble stasjonært i hekkekoloniene, mens trekkende individer hadde bedre overlevelse fordi de kunne finne rasteplasser i ly fra vinden (Acker et al. 2020). Om dette kan overføres direkte til Norge er derimot usikkert, siden eksponering av kolonien spiller en stor rolle.
Bestandsutvikling
Toppskarvbestanden i Barentshavet lå i 1980 på rundt 10 000 par, men gikk kraftig ned til ca. 1 000 par i 1994. Etter dette økte den igjen til omtrent 5 000 par i 2013. Estimatet for 2024 ligger ved under 2000 par.
I Norskehavet ble bestanden fordoblet fra omtrent 10 000 par i 1980 til 20 000 par i 2006, men gikk deretter kraftig ned, og talte ca. 9000 par i 2013 og 5407 par i 2024.
Også bestanden av toppskarv langs Nordsjøen og Skagerrak økte kraftig, fra omtrent 1000 hekkende par i 1980 til omtrent 17 000 par i 2003. I 2013 talte hekkebestanden her ca. 14 000 par, men har dalt til 7100 par i 2024.
Nøkkellokaliteter
Demografi
Overlevelse
Studier i Skottland har vist at toppskarv i sitt første leveår har veldig høy dødelighet, og det er få unger som overlever den første vinteren (Daunt et al. 2007). Overlevelsen av voksne individer fra ett år til det neste varierer også mye og ligger vanligvis mellom 70% og 95%, men den kan være så lav som 46% i dårlige år.
På Østkysten av Skottland har flere studier vist at vinterstormer fører til massedød-episoder, spesielt i områder hvor det finnes lite ly for vær og vind (Acker et al. 2021).
Toppskarv har nesten ingen fettreserver på kroppen, noe som gjør at de er utsatt for sult hvis værforholdene er slik at de ikke kan beite på flere dager. Mangel av kroppsfett sammen med at fjærdrakten ikke er vanntett, gjør dem også utsatt for nedkjøling hvis det i tillegg til mye vind også kommer nedbør.
Stormer kan ha en stor negativ effekt på toppskarvene også i hekkeperioden, noe som kan påvirke hekkesuksess spesielt i reir som er åpent og eksponert (Newell et al. 2015).
Reproduksjon
Toppskarv hekker i kolonier av ulik størrelse, fra noen få par til flere tusen. Arten kan hekke åpent, men for å unngå predasjon hekker de fleste skjult under busker eller steiner. De kan også hekke i menneskelige konstruksjoner som moloer. Alder ved kjønnsmodning er to til tre år, og hunnfuglen legger typisk 2-3 egg (1-5).
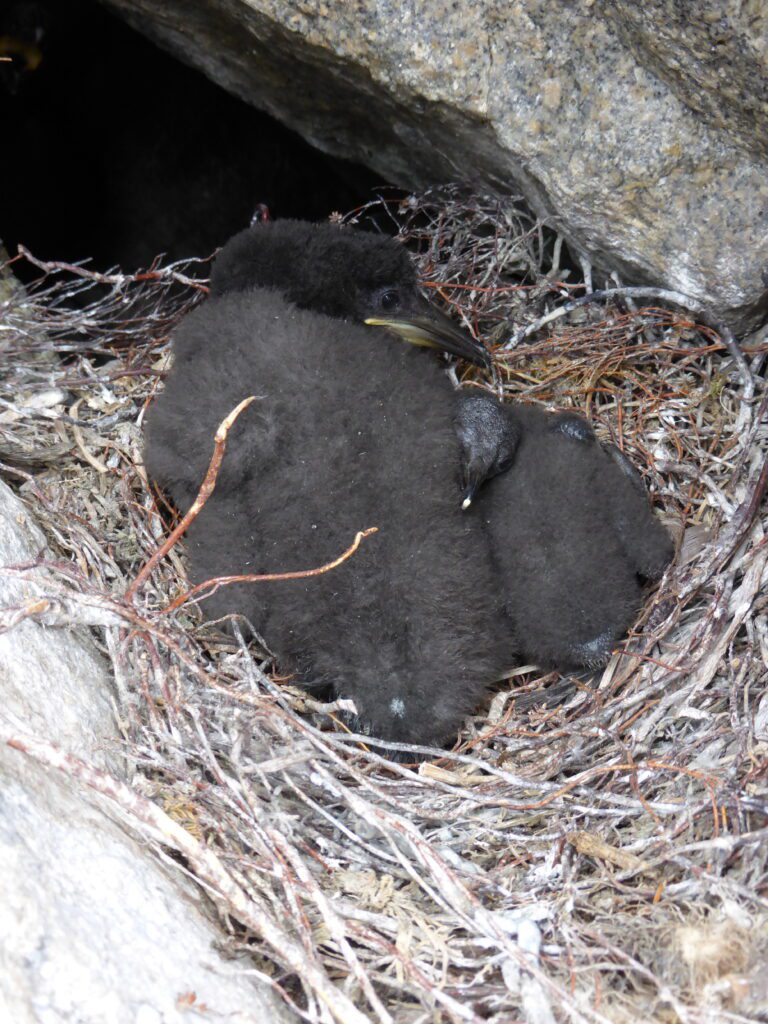
Eggleggingen i Sør-Norge skjer typisk i slutten av april / starten av mai, og er senere i Nord-Norge. Hekketidspunkt kan variere mye fra år til år også i samme koloni. Eggene ruges av begge foreldrene i 30-31dager. Ungene klekker uten dun, og er avhengig av varme fra foreldrene de første tre ukene. Det er typisk at eggene klekker med omtrent ett døgns mellomrom.
Den eldste ungen i reiret er derfor størst, og det er også den som får mest mat fra foreldrene. Ungene blir matet av begge foreldrene. De forblir avhengige av mating fra foreldrene i rundt 40 dager etter de har blitt flygedyktige i en alder av 53-57 dager (Daunt et al. 2007).
Hekkesuksess varierer, men ligger i gjennomsnitt mellom 1 og 1,5 unge per reir. I år med dårlig mattilgang er det typisk at ungen som klekket sist, og derfor er minst i størrelse, dør.
Studier på Sklinna i Trøndelag har vist at hekkesuksessen er avhengig av tilgang til små sei av 0- og 1-årsklassene (< 25 cm i lengde). I år med god tilgang på små-sei klarer foreldrene å finne maten nærmere kolonien, og hekkesuksess er høyere, mens i år med dårlig tilgang på små-sei har toppskarv lavere hekkesuksess til tross for at de søker etter maten i en større radius rundt kolonien (Lorentsen et al. 2019).
Næringsvalg
Toppskarv lever hovedsakelig av fisk som den fanger mellom havoverflaten og maksimalt 50 m dybde. Studier fra flere kolonier i Norge har vist at toppskarv foretrekker grunne områder nært hekkekoloniene og tareskog som beiteområder i hekkeperioden (Christensen-Dalsgaard et al. 2017, Dehnhard et al. 2022). Torskefisk, og spesielt små sei < 25 cm lengde, er foretrukket diett i tareskogene, mens sil (tobis) dominerer dietten hvor det finnes sandbunn (Hillersøy & Lorentsen 2012, Howells et al. 2018).
På Sklinna har diettstudier på toppskarv vist at mengden små sei i dietten korrelerer med mengden sei registrert av Havforskningsinstituttet to år senere, noe som tyder på at toppskarv kan brukes som indikator på forekomst av sei (Lorentsen et al. 2018).
Påvirkningsfaktorer og trusler
Toppskarv er sårbar for mange forskjellige trusler f.eks. klimaendringer, fiskeriaktivitet, predasjon og forurensing. Stormaktivitet både om sommeren og vinteren kan utgjøre en trussel mot toppskarv, siden stormer påvirker både hekkesuksess og overlevelse. Antall stormer og intensitet av stormer er forventet å øke med klimaendringer, slik at denne trusselen vil ha større betydning i framtida.
Næringstilgang er avgjørende for god hekkesuksess for toppskarv. Tareskogsområder utgjør et viktig beitehabitat for toppskarv i Norge, fordi små torskefisk, spesielt sei, bruker tareskogen som oppvekstområde der de finner mat og beskyttelse. Klimaoppvarming og marine hetebølger forventes å ha en negativ effekt på utbredelsen av tareskog. Også grønne kråkeboller utgjør en trussel mot tareskogen. Kråkebollene, som pga. overfiske av steinbit og torsk ikke lengre ha naturlige fiender, beiter ned tareplantene, som betyr at det finnes lite tareskog fra Helgelandskysten og nordover. Det er enda uklart hvordan mangel på tareskog påvirker bestanden av torskefisk, og om det påvirker toppskarv indirekte. I Sør- og Midt-Norge opp til Vega høstes tareskogene kommersielt, noe som kan påvirke forekomst av småsei og andre torskefiskarter (Lorentsen et al. 2010, Norderhaug et al. 2020). Toppskarv fra Sklinna beiter i stor grad i områder med tarehøsting (Christensen-Dalsgaard et al. 2020).
Toppskarv er utsatt for bifangst i kystnært garnfiske, som rognkjeksfiske (Christensen-Dalsgaard et al. 2019). Arten kan bli tiltrukket til oppdrettsanlegg (Carss 1994), noe som fører til konflikt, og som kan utgjøre en trussel på sikt. En studie fra Skottland viser at havvindanlegg som kombinerer fiskeoppdrett med havvind kan utgjøre en stor trussel for spesielt toppskarv (Benjamins et al. 2020). I Norge er jakt på toppskarv tillatt i oktober og november i alle områder nord for Trondheimsfjorden i Trøndelag fylke.
Toppskarv er også sårbar for predasjon av mink (Barros et al. 2016), men også naturlige predatorer som havørn, oter og måker. Mens måker hovedsakelig tar egg eller små unge kan mink, havørn og oter drepe både ungfugl og voksenfugl.
Oljeutslipp kan utgjøre en stor trussel for mange sjøfuglarter, deriblant også toppskarv. Etter forliset av oljetankeren Prestige ved spanske kysten i 2002 som førte til et stort oljesøl ble det registrert en reduksjon av hekkesuksess med 45% sammenliknet med før utslippet. Effekten ble målt fortsatt ti år etter utslippet (Barros et al. 2014).
Som andre sjøfugl er toppskarv også utsatt for miljøgifter. Toppskarvegg fra Røst i Lofoten og Sklinna i Trøndelag inneholdt en rekke forskjellige miljøgifter, deriblant PCBs og PAHs som tyder på historisk forurensing, men også nyere typer miljøgifter som PFAS. Mengden av miljøgifter målt i toppskarvegg kan påvirke fuglehelsen negativt (Huber et al. 2015).
Toppskarv er også utsatt for plastforurensing, og en studie fra Sklinna fant mikroplast i 69 % av skittprøver fra toppskarvunger, i gjennomsnitt 17 mikroplast-partikler per g skitt (tørrvekt) (Maaseide et al. 2024). Det er ukjent om nivået av mikroplast funnet i toppskarv-skitt kan ha negative effekter. Større plastpartikler, fiskegarn og tau finnes også jevnlig i toppskarvreir og generelt i hekkekolonier, og kan fører til at unge eller voksenfugl setter seg fast slik at de kveles eller sultes til døde (O’Hanlon et al. 2021).
Referanser
Acker, P., Daunt, F., Wanless, S., Burthe, S.J., Newell, M.A., Harris, M.P., Grist, H., Sturgeon, J., Swann, R.L., Gunn, C., Payo-Payo, A. & Reid, J.M. (2021). Strong survival selection on seasonal migration versus residence induced by extreme climatic events. Journal of Animal Ecology 90: 796-808. doi: 10.1111/1365-2656.13410
Barros, Á., Álvarez, D. & Velando, A. (2014). Long-term reproductive impairment in a seabird after the Prestige oil spill. Biology Letters 10(4). doi: 10.1098/rsbl.2013.1041
Barros, Á., Romero, R., Munilla, I., Pérez, C. & Velando, A. (2016). Behavioural plasticity in nest-site selection of a colonial seabird in response to an invasive carnivore. Biological Invasions 18(11): 3149-3161. doi: 10.1007/s10530-016-1205-3
Benjamins, S., Masden, E. & Collu, M. (2020). Integrating wind turbines and fish farms: An evaluation of potential risks to marine and coastal bird species. Journal of Marine Science and Engineering 8(6): 414. doi: 10.3390/jmse8060414
BirdLife International, X. (2018). Species factsheet: Gulosus aristotelis. https://datazone.birdlife.org/species/factsheet/european-shag-gulosus-aristotelis
Burnell, D., Perkins, A.J., Newton, S.F., Bolton, M., Tierney, T.D. & Dunn, T.E. (2023). Seabirds Count. A census of breeding seabirds in Britain and Ireland (2015-2021). Lynx Nature Books.
Carss, D.N. (1994). Killing of piscivorous birds at Scottish fin fish farms, 1984–1987. Biological Conservation 68(2): 181-188. doi: 10.1016/0006-3207(94)90349-2
Christensen-Dalsgaard, S., Mattisson, J., Bekkby, T., Gundersen, H., May, R., Rinde, E. & Lorentsen, S.-H. (2017). Habitat selection of foraging chick-rearing European shags in contrasting marine environments. Marine Biology 164(10): 196. doi: 10.1007/s00227-017-3227-5
Christensen-Dalsgaard, S., Anker-Nilssen, T., Crawford, R., Bond, A., Sigurðsson, G.M., Glemarec, G., Hansen, E.S., Kadin, M., Kindt-Larsen, L., Mallory, M., Merkel, F.R., Petersen, A., Provencher, J. & Bærum, K.M. (2019). What’s the catch with lumpsuckers? A North Atlantic study of seabird bycatch in lumpsucker gillnet fisheries. Biological Conservation 240: 108278. doi: 10.1016/j.biocon.2019.108278
Christensen-Dalsgaard, S., Mattisson, J., Norderhaug, K.M. & Lorentsen, S.-H. (2020). Sharing the neighbourhood: assessing the impact of kelp harvest on foraging behaviour of the European shag. Marine Biology 167(9): 136. doi: 10.1007/s00227-020-03739-1
Daunt, F., Afanasyev, V., Adam, A., J.P., C. & Wanless, S. (2007). From cradle to early grave: juvenile mortality in European shags Phalacrocorax aristotelis results from inadequate development of foraging proficiency. Biology Letters 3(4): 371-374. doi: doi:10.1098/rsbl.2007.0157
Dehnhard, N., Mattisson, J., Tarroux, A., Anker-Nilssen, T., Lorentsen, S.-H. & Christensen-Dalsgaard, S. (2022). Predicting foraging habitat of European shags – a multi-year and multi-colony tracking approach to identify important areas for marine conservation. Frontiers in Marine Science 9: 852033. doi: 10.3389/fmars.2022.852033
Fauchald, P., Anker-Nilssen, T., Barrett, R.T., Bustnes, J.O., Bårdsen, B.J., Christensen-Dalsgaard, S., Descamps, S., Engen, S., Erikstad, K.E., Hanssen, S.A., Lorentsen, S.-H., Moe, B., Reiertsen, T.K., Strøm, H. & Systad, G.H. (2015). The status and trends of seabirds breeding in Norway and Svalbard. NINA Report. Norwegian Institute for Nature Research
Frederiksen, M. (2010). Appendix 1: Action plan for seabirds in Western-Nordic areas Report from a workshop in Malmö, Sweden, 4–5 May 2010. TemaNord
Grémillet, D., Gallien, F., El Ksabi, N. & Courbin, N. (2020). Sentinels of coastal ecosystems: the spatial ecology of European shags breeding in Normandy. Marine Biology 167(4): 43. doi: 10.1007/s00227-020-3655-5
Hillersøy, G. & Lorentsen, S.-H. (2012). Annual variation in the diet of breeding European shag (Phalacrocorax aristotelis) in Central Norway. Waterbirds 35: 420-430.
Howells, R.J., Burthe, S.J., Green, J.A., Harris, M.P., Newell, M.A., Butler, A., Wanless, S. & Daunt, F. (2018). Pronounced long-term trends in year-round diet composition of the European shag Phalacrocorax aristotelis. Marine Biology 165(12): 188. doi: 10.1007/s00227-018-3433-9
Huber, S., Warner, N.A., Nygård, T., Remberger, M., Harju, M., Uggerud, H.T., Kaj, L. & Hanssen, L. (2015). A broad cocktail of environmental pollutants found in eggs of three seabird species from remote colonies in Norway. Environmental Toxicology and Chemistry 34(6): 1296-1308. doi: 10.1002/etc.2956
celandic Institute of Natural History, X. (2023). Icelandic Institute of Natural History. https://www.ni.is/en/search-biota.
Kennedy, M. & Spencer, H.G. (2014). Classification of the cormorants of the world. Molecular Phylogenetics and Evolution 79: 249-257. doi: https://doi.org/10.1016/j.ympev.2014.06.020orentsen, S.-H., Sjøtun, K. & Grémillet, D. (2010). Multi-trophic consequences of kelp harvest. Biological Conservation 143(9): 2054-2062. doi: 10.1016/j.biocon.2010.05.013
Lorentsen, S.H., Anker-Nilssen, T. & Erikstad, K.E. (2018). Seabirds as guides for fisheries management: European shag Phalacrocorax aristotelis diet as indicator of saithe Pollachius virens recruitment. Marine Ecology Progress Series 586: 193-201. doi: 10.3354/meps12440
Lorentsen, S.H., Mattisson, J. & Christensen-Dalsgaard, S. (2019). Reproductive success in the European shag is linked to annual variation in diet and foraging trip metrics. Marine Ecology Progress Series 619: 137-147. doi: 10.3354/meps12949
Moe, B., Daunt, F., Bråthen, V.S., Barrett, R.T., Ballesteros, M., Bjørnstad, O., Bogdanova, M.I., Dehnhard, N., Erikstad, K.E., Follestad, A., Gíslason, S., Hallgrimsson, G.T., Lorentsen, S.H., Newell, M., Petersen, A., Phillips, R.A., Ragnarsdóttir, S.B., Reiertsen, T.K., Åström, J., Wanless, S. & Anker-Nilssen, T. (2021). Twilight foraging enables European shags to survive the winter across their latitudinal range. Marine Ecology Progress Series 676: 145-157. doi: 10.3354/meps13697
Maaseide, B.M.T., Ofstad, J., Erbe, A., Jaspers, V.L.B., Monclús, L. & Dehnhard, N. (2024). Microplastics in faeces of European shags Gulosus aristotelis in central Norway. Marine Pollution Bulletin 208: 117026. doi: 10.1016/j.marpolbul.2024.117026
Newell, M., Wanless, S., Harris, M.P. & Daunt, F. (2015). Effects of an extreme weather event on seabird breeding success at a North Sea colony. Marine Ecology Progress Series 532: 257-268.
Norderhaug, K.M., Filbee-Dexter, K., Freitas, C., Birkely, S.R., Christensen, L., Mellerud, I., Thormar, J., van Son, T., Moy, F., Vázquez Alonso, M. & Steen, H. (2020). Ecosystem-level effects of large-scale disturbance in kelp forests. Marine Ecology Progress Series 656: 163-180. doi: 10.3354/meps13426
O’Hanlon, N.J., Bond, A.L., Masden, E.A., Lavers, J.L. & James, N.A. (2021). Measuring nest incorporation of anthropogenic debris by seabirds: An opportunistic approach increases geographic scope and reduces costs. Marine Pollution Bulletin 171: 112706. doi: 10.1016/j.marpolbul.2021.112706
Stokke, B.G., Jacobsen, K.-O., Liselevand, T., Solvang, R. & Strøm, H. (2021). Artsgruppeomtale fugler (Aves). Norsk rødliste for arter 2021. Norwegian Biodiversity Information Centre. https://artsdatabanken.no/lister/rodlisteforarter/2021/. Visited 22 Feb 2023.
Strøm, H., Gavrilo, M.V., Krasnov, Y.V. & Systad, G.H. (2009). Seabirds. In: Stiansen, J. E., Korneev, O., Titov, O., Arneberg, P. E., Filin, A., Hansen, J. R., Høines, Å. & Marasaev, S. C.-e. (Eds.) Joint Norwegian-Russian environmental status 2008. Report on the Barents Sea Ecosystem. Part II – Complete report. IMR/PINRO Joint Report Series, pp 67-73.
Åhlund, M. & Järås, T. (2020). Toppskarven i Sverige – från raritet til häckfågel med exponentiell tillväxt. Birdlife Sverige 2020. Fågelåret 2019.: 48-55.