Lomvi
Engelsk navn: Common Guillemot
Vitenskapelig navn: Uria aalge
Snarveier:
Beskrivelse
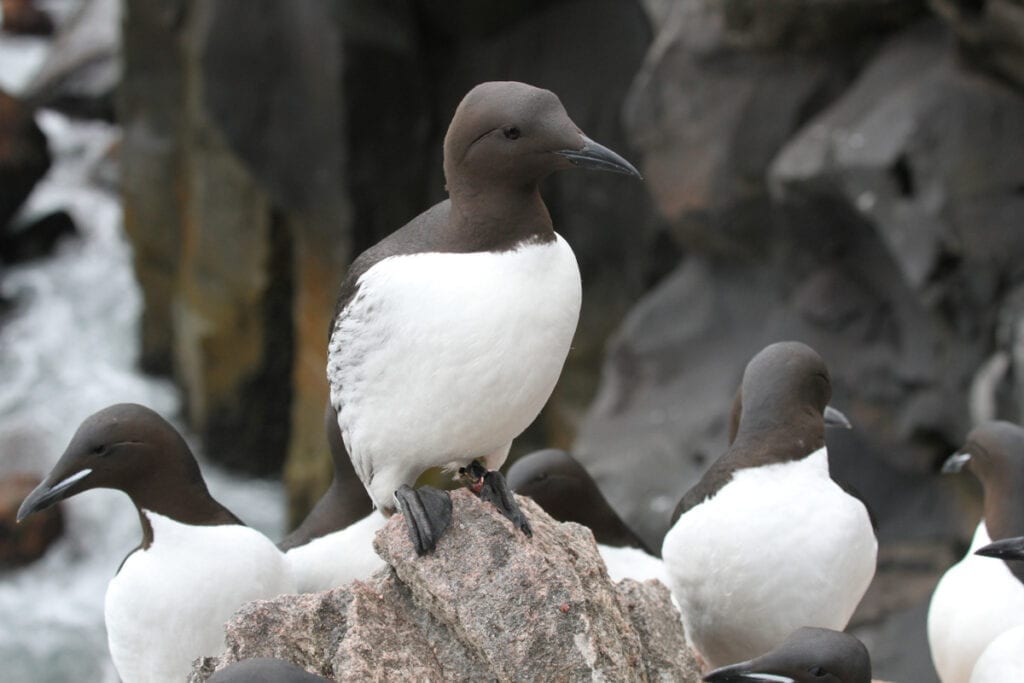
Lomvi er den største av alkefuglene, og kjennetegnes ved at den hekker i tette kolonier i fuglefjellene, hvor den legger sitt ene egg rett på åpne hyller eller i steinurer. Den er ca. 45 cm lang og veier rundt 1 kg. Fjærdrakten er brunsvart og hvit, hvor hode, nakke og strupe, rygg og overside av vinger er brunsvarte og bryst og buk er hvit.
Til forskjell fra sin slektning polarlomvien som den ligner mye på, har lomvien mørke, melerte tegninger på kroppsidene. Et annet kjennetegn som skiller lomvien fra polarlomvi, er at den er noe større med et spinklere og litt lengre nebb.
Hunnen og hannen er like i utseende, men hannen er en anelse større og tyngre enn hunnen (Harris og Wanless 1988). Lomvien finnes i to ulike varianter (morfer), hvor den ene kjennetegnes med en hvit ring rundt øyet som fortsetter som en hvit stripe bakover på hodet. Det ser ut som den har briller eller en ring rundt øyet, og den kalles derfor ringvi på norsk. Den andre varianten mangler denne hvite «brillen» og er mørk på hele hodet, inkludert rundt øyet.
Sommerdrakten til lomvien kjennetegnes ved at hele hodet og halsen er mørk. I vinterdrakt er kinn, strupe og hals hvite. Arten er tradisjonelt oppdelt i flere underarter, og i nordlige områder, inkludert våre strøk, finnes U. a. aalge, mens U. a. intermedia er mer vanlig i Østersjøen.
Relevante lenker:
Rødlistestatus for lomvi
Lomvi har rødlistestatus som kritisk truet (CR) på fastlands Norge, og nært truet (NT) på Svalbard (Stokke et al. 2021). Årsaken til at den er kritisk truet på fastlands Norge er den sterke bestandsnedgangen på > 80% i løpet av tre generasjoner. Vurderingsperioden for lomvi er 45 år, pga artens generasjonslengde på 15 år (Bird et al. 2020).
- Ikke vurdert
- Ikke egnet
- Livskraftig
- Datamangel
- Nær truet
- Sårbar
- Sterkt truet
- Kritisk truet
- Regionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
- NEIkke vurdert
- NAIkke egnet
- LCLivskraftig
- DDDatamangel
- NTNær truet
- VUSårbar
- ENSterkt truet
- CRKritisk truet
- RERegionalt utdødd
Bestandsstørrelse
Nasjonalt
| Region/område | Estimert antall (par) | År | Referanse |
|---|---|---|---|
| Svalbard | 172 986 | ||
| Bjørnøya | 172 716 | 2024 | SEAPOP 2024 |
| Øvrige områder | 270 | 2024 | SEAPOP 2024 |
| Jan Mayen | 183 | 2024 | SEAPOP 2024 |
| Fastlandet | 42 305 | ||
| Barentshavet | 39 876 | 2024 | SEAPOP 2024 |
| Norskehavet | 2 104 | 2024 | SEAPOP 2024 |
| Nordsjøen | 325 | 2024 | SEAPOP 2024 |
| Norge totalt | 215 474 |
Internasjonalt
| Område | Estimat | Enhet | Trend | År | Kilde |
|---|---|---|---|---|---|
| Canada | 1 800 000 | Individer | Stabil | Environment and Climate Change Canada and Birds Canada 2024 | |
| Danmark | 19 500 | Par | Økende | 2024 | Birdlife Danmark & Dansk Ornitologisk Forening 2026 |
| England | 136 696 | Par | Burnell et al. 2023 | ||
| Finland | 130 – 238 | Individer | Økende (langsiktig) | 2020 – 2025 | BirdLife Suomi 2026 |
| Færøyene | 100 000 | Par | 1999 | B. Olsen (pers. kom. sitert i Frederiksen 2010); The Faroese Bird Migration Atlas 2026 | |
| Grønland | <1000 | Par | 2007 | Boertmann 2008 | |
| Island | 698 053 | Par | Synkende | 2006 – 2008 | Garðarsson et al. 2019 |
| Nord-Irland (UK) | 109 123 | Par | Burnell et al. 2023 | ||
| Republikken Irland | 92 678 | Par | Burnell et al. 2023 | ||
| Russland | 8 550 – 9 150 | Par | Strøm et al. 2009 | ||
| Skottland | 562 939 | Par | Burnell et al. 2023 | ||
| Sverige | 30 000 | Par | Økende (2003-2022) | 2022 | BirdLife Sverige og Svensk Fågeltaxering (2023) |
| Wales | 73 315 | Par | Burnell et al. 2023 | ||
| Globalt | >18 000 000 | Individer | Økende | BirdLife International 2018 (trend); del Hoyo et al. 1996 |
Hekkeutbredelse
Lomvien hekker rundt hele den nordlige halvkule (Gaston og Jones 1998), og det finnes hekkekolonier både i Nord-Atlanteren og i det nordlige Stillehavet. Sørligste hekkeforekomst i Europa er Portugal, og nordligste er Svalbard og Novaja Semlja (Russland). Det finnes også hekkeforekomster i Baltikum.
Lomvien har en mer sørlig, såkalt boreal utbredelse enn den mer arktiske polarlomvien, men i enkelte kolonier finnes det overlapp mellom begge artene. I Norge finnes hekkeforekomster fra Rogaland i sør til Øst-Finnmark i nord, i tillegg til hekkeforekomstene på Jan Mayen, Bjørnøya og Spitsbergen.
Kart: Hekkeutbredelse i ulike regioner. Boblenes størrelse representerer estimert bestandsstørrelse.
Les mer…
Her oppgis estimerte hekkebestander, per havområde, for norske sjøfugler i 2024. To metoder ble brukt for å estimere bestandsstørrelser. For store måker der dronedata var tilgjengelig, samt for lomvier, brukte vi en kombinasjon av prediksjoner fra artsutbredelsesmodeller og abundansmodeller. For kolonihekkende arter og arter der den forrige metoden ikke kunne benyttes, ble det gjort en enkel imputering basert på siste tilgjengelige totaltelling per art og lokalitet, kombinert med regionale trender. For toppskarv ble dette supplert med prøvefelt, og for lunde med arealberegning.
Trekk- og vinterområder
I Norge har vi god kunnskap om trekk og vinterutbredelsen til lomvi fra nøkkellokaliteter hvor hekkende individer har vært utstyrt med helårlige sporingsbrikker (Sklinna, Hjelmsøya, Hornøya og Bjørnøya; SEATRACK.no).
Om høsten trekker nesten alle lomviene fra disse koloniene til Barentshavet. Høstutbredelsen til disse koloniene overlapper, og det sentrale eller sørøstlige Barentshavet utpeker seg som et viktig høstområde, da disse bestandene utgjør ca 90.% av Norges totale hekkebestand av lomvi. Rett etter hekketiden foretar lomvien fjærfelling eller myting (fornyer fjærdrakten).
Siden den blir flyveudyktig i deler av mytetida har den behov for å være i et område med forutsigbare og gode næringsforhold. Barentshavet om høsten er kjent for å være et slikt område (Wassmann et al. 2006).
I tillegg har lomvien et svømmetrekk, hvor hannen svømmer sammen med ungen fra hekkeplassen til et oppvekstområde. Ungen forlater hekkeplassen når den er 1/3 av voksen størrelse og fortsatt flyveudyktig. Det er vist at svømmetrekket fra Bjørnøya og Hornøya går fra kolonien til et område i det sørøstlige Barentshavet (Erikstad et al upublisert, Merkel og Strøm 2024), og det ser ut som de utnytter havstrømmer for å effektivisere svømmetrekket.
Vinterutbredelsen til ulike lomvibestander varierer litt mer (SEATRACK.no). Lomvi fra Bjørnøya, Hornøya og Hjelmsøya forblir i Barentshavet gjennom vinteren, men overlapper i mindre grad i utbredelse. Hornøya holder seg i det sør-østlige delene av Barentshavet, Hjelmsøya trekker litt mer vestover og Bjørnøya holder seg mer i det sentrale Barentshavet. Lomvi fra Sklinna trekker i hovedsak ut av Barentshavet og sørover tilbake mot kysten av Midt-Norge.
Arealbruk i ulike årstider basert på sporingsinformasjon fra individer i utvalgte lokaliteter. Velg hvilke årstider du vil se arealbruken for i øvre venstre hjørne.
Les mer…
Kartet viser kjernetetthetsfordelinger (kernel distributions) lagt over alle tilgjengelige datapunkter for valgt årstid. Disse er basert på individuelle sporingsdata fra hekkende fugler på lokaliteter angitt med sirkler (svart sirkel = informasjon tilgjengelig for høst, vinter og vår; hvit sirkel = informasjon tilgjengelig for sommer).
Økende fargeintensitet på polygonene representerer hhv 25 %, 50 % og 75 % sannsynlighetskonturer for disse funksjonene. Med andre ord viser kartene sannsynligheten for at fugler av denne arten befinner seg i området, basert på de tilgjengelige dataene.
Kilde for høst-, vinter- og vår-data er SEATRACK. Kilde for sommerdata er SEAPOP.
Bestandsutvikling
Ifølge Brun (1969) var den norske lomvibestanden på 1960-tallet estimert til 240 000 – 320 000 individer.
I tiårene etterpå gikk lomvibestandene sterkt tilbake, og perioden 1980 til 2013 viste en bestandsnedgang på ca. 80-90 % (Fauchald et al. 1990). I 1986/87 skjedde en stor akutt bestandsreduksjon i Barentshavet, noe som i ettertid har vist seg å skyldes sammenfallende lave forekomster av flere viktige byttedyrbestander, som lodde og yngre årsklasser av sild og torsk (Erikstad et al. 2013), og spesielle vær- og klimaforhold (Mesquita et al. 2015)
Ifølge estimeringer for perioden 2013 til 2024, er det variasjon i utviklingen av bestandene på fastlandet, mens det er en økning i hekkebestandene på Bjørnøya og Spitsbergen. Sklinna, Røst og Hjelmsøya har hatt økning fra hhv. ca 1000 til 3600 individer (Sklinna), 43 til 99 individer (Røst), og 13 500 til 23 151 individer (Hjelmsøya) det siste tiåret. Mens Runde og Hornøya har hatt nedgang, med hhv. 101 til 7 individer (Runde), 24 000 til 12 000 individer (Hornøya). På Bjørnøya har antallet hekkende lomvier økt fra ca 203 000 til ca 290 000 individer.
Estimerte årlige hekkebestander på nøkkellokalitetene. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Estimerte årlige hekkebestander. Superskript ts betyr at estimatet er et totalestimat for hele populasjonen innenfor valgte nøkkellokalitet, og i betyr estimat for størrelsen av en hekkekoloni/lokalitet som er del av en større bestand i valgte nøkkellokalitet. For noen arter og kolonier er tallene basert på en totaltelling, mens andre estimat er basert på telling av prøvefelt (deler av en bestand), hvorav total hekkbestand er beregnet vha. utvikling i prøvefelt og tidligere tall på total hekkebestand.
Demografi
Overlevelse
Som de fleste sjøfugler lever lomvien lenge. Den lengstlevende lomvi registrert er en lomvi i Sverige som ble 49 år. Gjennomsnittlig levealder hos «norske» lomvi er 23 år. Den høyeste alder som er registrert i Norge er en lomvi på Hornøya som ble ringmerket som voksen hekkefugl i 1988, og som ble sett igjen hekkende på samme fjellhylle sommeren 2025 (Reiertsen upublisert). Dersom en antar at første år som hekkefugl er fire år, vil denne være minimum 42 år. Siden lomvi lever lenge, er også voksenoverlevelsen høy for denne arten (gjennomsnitt i Norge = 91,3%).
Årlige overlevelsesrater med tilhørende konfidensintervall. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Overlevelsesrate og konfidensintervall er oppgitt for hvert år. Overlevelserate er basert på «fangst-gjenfangst»-data som blir innhentet på utvalgte nøkkellokaliteter hvert år: Et utvalg individuelle fugler blir merket med hver sin ring med unik kode, og basert på observasjoner av disse individene fra år til år kan en beregne gjennomsnittlig årlig overlevelse over samme tidsperiode.
Reproduksjon
Lomvien legger kun ett egg og fostrer derfor opp maksimalt én unge per år. Reproduksjonen regnes derfor som lav, og overlevelsen til unger varierer mye fra år til år. Gjennomsnittlig alder for å starte reproduksjon er fire år, men kan variere opp til 7 år (Ainley et al. 2021). Tidspunktet for egglegging og klekking kan være en viktig driver for demografien til ulike arter, og kan påvirkes av endringer i klima.
Dykkende fugler som lomvi, som har en relativt kort hekkesesong, har vist mindre grad av endring i hekketidspunkt enn andre sjøfuglarter (Descamps et al. 2019). Eksempelvis er har ankomstdatoen for lomvi på Hornøya vist seg å være i perioden tidlig mars til medio mars (Reiertsen upublisert), egglegging starter rundt 20. mai (Reiertsen personlig observasjon) og klekking starter rundt 20. juni, med liten variasjon i gjennomsnittlig klekkedato mellom år (Burr et al. 2016).
Beregnet årlig reproduksjon på nøkkellokalitetene. Enhet avhenger av art og lokalitet. Fjern eller legg til grafer ved å klikke på lokalitetens navn til høyre for figuren.
Les mer…
Hekkesuksess er definert på flere ulike måter avhengig av utvalgte arters livshistorie og overvåkingsmetodikk for de ulike nøkkellokalitetene. Alkefuglene (bortsett fra teist), i tillegg til havhest og havsule, legger kun ett egg pr par, mens de resterende har en kullstørrelse fra to og oppover. For de kolonihekkende artene, f.eks. lunde og havsule, er hekkesuksess målt på et utvalg av populasjonen, og de årlige estimatene har derfor et konfidensintervall som beskriver usikkerheten på estimatet. For noen arter/områder er hekkesuksess målt på samtlige individ i populasjonen, og det er derfor ikke noe usikkerhet knyttet til de årlige verdiene av hekkesuksess.
Næringsvalg
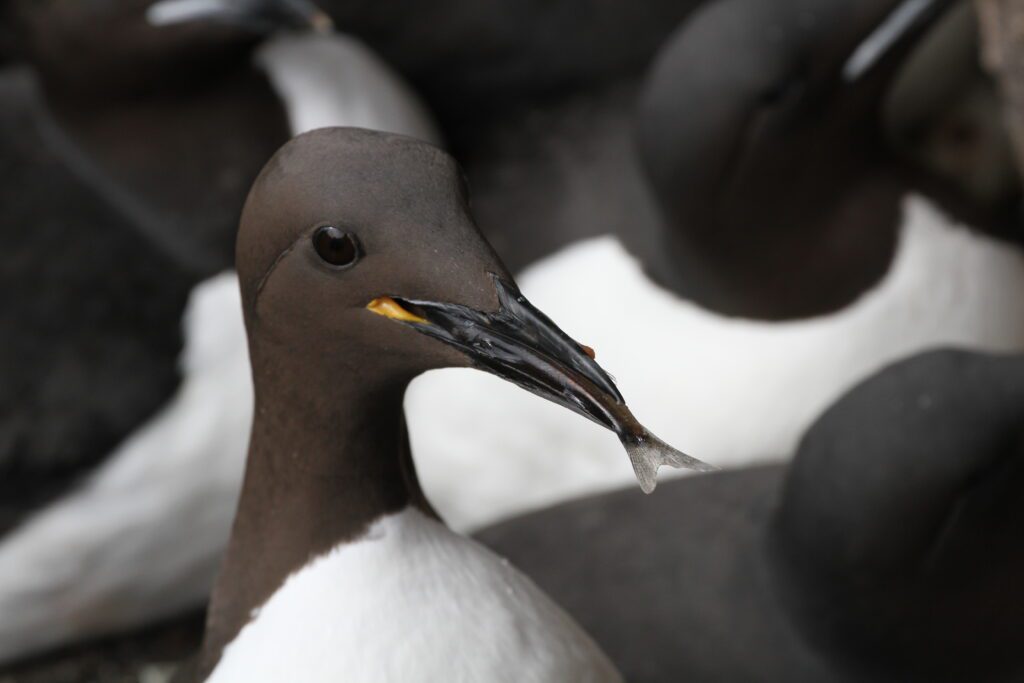
Lomvien regnes som en fiskespiser, og spiser stimfisk som lodde, sild, og tobis, men også yngre årsklasser av for eksempel sei og torskefisk (Barrett et al 1997). Den dykker etter maten sin, og bruker vingene for å manøvrere under vann. Vinterstid kan dykkene gå ned til mer enn 150 meter. I hekketiden bringer den en og en fisk i nebbet inn til ungen sin. Det er vist at voksne hekkefugler foretrekker å spise torskelarver (Bugge et al. 2010), som er vist å drifte med kyststrømmer fra gytegrunner lenger sør langs kysten, og akkumulere ved fuglefjellene i nord (Sandvik et al. 2016).
Påvirkningsfaktorer og trusler
Ifølge Fauchald et al. 2015 og Birdlife International (2020) er truslene mot lomvi-bestandene flere, og inkluderer endring in næringstilgang som følge av klimaendringer og overfiske, bifangst fra fiskerier, oljesøl og forurensing, predasjon og forstyrrelser i hekketiden.
Referanser
Ainley, D. G., D. N. Nettleship, and A. E. Storey (2021). Common Murre (Uria aalge), version 2.0. In Birds of the World (S. M. Billerman, P. G. Rodewald, and B. K. Keeney, Editors). Cornell Lab of Ornithology, Ithaca, NY, USA. https://doi.org/10.2173/bow.commur.02
Anker-Nilssen, T., Barrett, R.T., Lorentsen, S.-H., Strøm, H., Bustnes, J.O., Christensen-Dalsgaard, S., Descamps, S., Erikstad, K.E., Fauchald, P., Hanssen, S.A., Lorentzen, E., Moe, B., Reiertsen, T.K. & Systad, G.H. (2015). SEAPOP. De ti første årene. Nøkkeldokument 2005-2014. SEAPOP. Norsk institutt for naturforskning, Norsk Polarinstitutt & Tromsø Museum – Universitetsmuseet. Trondheim, Tromsø. 58 s.
Artsdatabanken: Lomvi Uria aalge (Pontoppidan, 1763) Hentet 09.03.2026 fra https://artsdatabanken.no/arter/takson/3570
Barrett, R. T., Bakken, V., & Krasnov, J. V. (1997). The diets of common and Brünnich’s guillemots Uria aalge and U. lomvia in the Barents Sea region. Polar research, 16(2), 73-84.
Bird, J. P., Martin, R., Akçakaya, H.R., Gilroy, J., Burfield, I.J., Garnett, S., Symes, A., Taylor, J., Sekercioglu, Ç.H. & Butchart, S.H. (2020). Generation lengths of the world’s birds and their implications for extinction risk. Conservation Biology
BirdLife International (2020) IUCN Red List for birds. Downloaded from http://www.birdlife.org on 26/08/2020
Bugge, J., Barrett, R.T. & Pedersen, T. Optimal foraging in chick-raising Common Guillemots (Uria aalge). J Ornithol 152, 253–259 (2011). https://doi.org/10.1007/s10336-010-0578-9
Burr, Z. M., ØVarpe, T.Anker-Nilssen, K. E.Erikstad, S.Descamps, R. T.Barrett, C.Bech, S.Christensen-Dalsgaard, S.-H.Lorentsen, B.Moe, T. K.Reiertsen, and H.Strøm. 2016. Later at higher latitudes: large-scale variability in seabird breeding timing and synchronicity. Ecosphere7(5):e01283. 10.1002/ecs2.1283
Descamps S, Ramírez F, Benjaminsen S, et al. Diverging phenological responses of Arctic seabirds to an earlier spring. Glob Change Biol. 2019;25:4081–4091. https://doi.org/10.1111/gcb.14780
Erikstad KE, Reiertsen TK, Barrett RT, Vikebø F, Sandvik H (2013) Seabird–fish interactions: the fall and rise of a common guillemot Uria aalge population. Mar Ecol Prog Ser 475:267-276 https://doi.org/10.3354/meps10084
Fauchald, P., Anker-Nilssen, T., Barrett RT, Bustnes, J.O., Bårdsen, B.-J., Christensen-Dalsgaard, S., Descamps, S., Engen, S., Erikstad, K.E., Hanssen, S.A., Lorentsen, S.-H., Moe, B., Reiertsen, T.K., Strøm, H., Systad, G.H. (2015). The status and trends of seabirds breeding in Norway and Svalbard. NINA Report 1151: 84 pp.
Gaston, A.J. og Jones, I.L. 1998. The auks: Alcidae. Oxford University Press Inc. New York.
M. P. Harris & S. Wanless (1988) Measurements and seasonal changes in weight of guillemots Uria aalge at a breeding colony, Ringing & Migration, 9:1, 32-36, DOI: 10.1080/03078698.1988.9673919
Merkel, B., & Strøm, H. (2024). Post‐colony swimming migration in the genus Uria. Journal of Avian Biology, 2024(1-2), e03153.
Mesquita MS, Erikstad KE, Sandvik H, Barrett RT, Reiertsen TK, Anker-Nilssen T, Hodges KI and Bader J (2015) There is more to climate than the North Atlantic Oscillation: a new perspective from climate dynamics to explain the variability in population growth rates of a long-lived seabird. Front. Ecol. Evol. 3:43. doi: 10.3389/fevo.2015.00043
Sandvik, H., Barrett, R.T., Erikstad, K.E., Myksvoll, M.S., Vikebø, F., Yoccoz, N.G., Anker-Nilssen, T., Lorentsen, S.H., Reiertsen, T.K., Skarðhamar, J. and Skern-Mauritzen, M., 2016. Modelled drift patterns of fish larvae link coastal morphology to seabird colony distribution. Nature communications, 7(1), p.11599.
Stokke BG, Dale S, Jacobsen K-O, Lislevand T, Solvang R og Strøm H (24.11.2021). Fugler: Vurdering av lomvi Uria aalge for Norge. Rødlista for arter 2021. Artsdatabanken. https://lister.artsdatabanken.no/rodlisteforarter/2021/28793. Nedlastet 09.03.2026
Wassmann, P., M. Reigstad, T. Haug, B. Rudels, M.L. Carroll, H. Hop, G.W. Gabrielsen, S. Falk-Petersen, S.G. Denisenko, E. Arashkevich, D. Slagstad, and O. Pavlova. 2006. Food web and carbon flux in the Barents Sea. Progress on Oceanography 71: 232 – 287.